ケフィアライフをお勧めする中垣技術士事務所



| 文献調査(発酵乳、腸内細菌の科学:研究の最前線) |
シトルリンは、健康寿命を延ばすための加齢に伴う脂質沈着を促進する |
Chunxia Li et al., |
|
|
| 要約 |
脂質の蓄積は、過剰であっても過少であっても死亡率を上昇させますが、一方で、加齢に伴う適度な脂質蓄積は健康寿命にとって極めて重要です。動物がどのようにして加齢状態を感知し、寿命を延ばすために適切な脂質蓄積を促進するのかについては、ほとんど解明されていません。本研究において我々は、線虫(Caenorhabditis elegans:カエノラブディティス・エレガンス)において、健康寿命に寄与する加齢に伴う脂質蓄積を制御する重要な代謝産物として、シトルリンを同定しました。シトルリンの欠乏は、加齢に伴う脂質蓄積を減少させるとともに寿命を短縮させましたが、これらの変化は食事によるシトルリンの補給によって回復可能でした。そのメカニズムとして、加齢に伴い転写因子MXL-3が活性化し、シトルリン産生に関与するオルニチン・トランスカルバミラーゼ(OTC)をコードする遺伝子pyr-1の発現を上昇させることが明らかになりました。産生されたシトルリンは、脂質合成酵素であるDGAT-2およびMBOA-2を活性化し、その結果、脂質の合成と蓄積を促進して寿命を延長させます。以上のことから、我々は健康寿命を維持するための「MXL-3-シトルリン-脂質合成」軸を解明し、代謝的な加齢制御に関する新たな知見を提示しました。 |
| 目次(クリックして記事にアクセスできます) |
| 1.はじめに |
| 2.結果 |
| 2.1.シトルリンは 線虫(C. elegans)において脂質リモデリングと寿命延長を協調的に促進する |
| 2.2.シトルリン生合成の遺伝的阻害は、脂質のリモデリングおよび寿命の延長を抑制する |
| 2.3.MXL-3はシトルリンを介して脂質代謝を再構築し、寿命を延長させる |
| 2.4.加齢はMXL-3の発現およびリソソームへの移行を誘発する |
| 2.5.アミノ酸残基228~235は、寿命延長に関与する加齢に伴う脂質蓄積の制御において、MXL-3の機能を決定づける |
| 2.6.シトルリンは寿命延長のためにDGAT-2/MBOA-2を介した脂質合成を活性化する |
| 2.7.MXL-3-シトルリン軸はDGAT-2/MBOA-2の発現およびリソソームへの局在を制御する |
| 3.考察 |
| 4.方法 |
| 4.1.線虫C. elegans株の維持およびRNAi |
| 4.2.トランスジェニック線虫の作製 |
| 4.3.固定線虫のLipidTOX染色 |
| 4.4.LysoTracker染色 |
| 4.5.TAGの分析 |
| 4.6.mRNAの単離、qPCR、およびRNA-Seq |
| 4.7.蛍光の可視化 |
| 4.8.ウェスタンブロッティング解析 |
| 4.9.シトルリンの食事性補給 |
| 4.10.メタボローム解析 |
| 4.11.シトルリンの測定 |
| 4.12.生存率の測定実験 |
| 4.13.タンパク質・低分子ドッキング実験 |
| 4.14.マイクロスケール熱泳動(MST)アッセイ |
| 4.15.データ解析 |
本文 |
| 1.はじめに |
| 加齢に伴い代謝の柔軟性(メタボリック・フレキシビリティ)が低下すると、脂肪の蓄積が誘発され(1)、それがさらに老化プロセスを促進するという悪循環が生じます(2,3)。エネルギー貯蔵と代謝調節の中心的役割を担う脂肪組織は、生体内で最も早期かつ顕著に老化が進む組織の一つです(4)。過剰な脂肪蓄積は、最終的に2型糖尿病、動脈硬化症、アルツハイマー病、がんなどの代謝性疾患をはじめとする加齢性疾患への脆弱性を高め(5–8)、寿命を短縮させる要因となります。一方で、体脂肪の減少もまた健康に有害であり、そのリスクは肥満の場合よりもさらに深刻なものとなり得ます(9)。脂肪ジストロフィーや脂肪組織の喪失は、脂肪組織からのホルモン分泌を低下させ代謝異常を引き起こす可能性があり、インスリン抵抗性、心筋症、発達遅滞、早老症候群などと関連しています(10)。白色脂肪組織を欠損させたトランスジェニックマウスでは、成長遅滞や早期死亡が認められます(11)。実際、ボディマス指数(BMI)と全死因死亡率や障害リスクとの関連に関するシステマティック・レビューにおいても、特に高齢者において、肥満(BMI > 30)だけでなく低体重(BMI < 18)の場合でも死亡率や障害リスクが高まることが示されています(12,13)。したがって、脂肪の蓄積量が多すぎても少なすぎても、死亡率の上昇や寿命の短縮を招く恐れがあります |
| 対照的に、集団コホート研究からは、特に高齢者において、適度な脂質蓄積が長寿と関連していることが報告されています(14–19)。注目すべきことに、ある20年間のコホート研究では、BMIが24~30(過体重または軽度肥満)の高齢者(65歳以上)において、全死因死亡リスクが最も低いことが示されました(15)。最近の研究では、肥満に伴う悪影響は加齢とともに減少し、80歳以上の高齢者では、高いBMIがむしろ保護的な効果をもたらすに至ることが示唆されています(18)。88万人以上を対象とした研究により、心血管疾患患者においては、過体重であることが良好な予後や全死因死亡率の低下と関連していることが明らかになりました(16–22)。遺伝的多様性の高いマウス(Diversity Outbred mice)を用いた食事制限の研究では、体重や体脂肪をより多く維持したマウス、特に高齢のマウスにおいて、寿命が長いことが示されました(23)。渡りを行う動物(24)、冬眠するクマ(25)、そして脂肪を蓄える尾を持つヒツジ(ファットテール種)(26)においても、高い体脂肪量は過酷な環境下での生存に有利に働きました。これらの研究を総合すると、寿命の延長と適度な脂質蓄積(いわゆる「健康的な脂肪」)との間には正の相関があることが示されています。しかし、適度な脂質蓄積が実際に老化を遅らせるのかどうか、またその制御メカニズムがどのようなものなのかについては、依然として解明されていません。 |
| マルチオミクス解析を用いた近年の研究により、40歳および60歳という2つの重要な転換期において、代謝や老化に関するバイオマーカーに大きな変化が生じ(27)、それが脂質蓄積のリスクを高めることが示されています(28)。しかし、健康寿命を維持するために、これらの段階にある個体がどのようなシグナルを感知して脂質蓄積を制御しているのかは、依然として解明されていません。モデル生物である線虫 C. elegans は、長年にわたり寿命研究に広く用いられてきました。我々は標的メタボロミクス解析を用い、高齢の線虫においてアミノ酸の一種であるシトルリンが有意に増加していることを見出しました。さらに、転写因子MXL-3がシトルリンの合成を制御し、合成されたシトルリンが脂質合成酵素DGAT-2およびMBOA-2を介して脂質合成を活性化することで、結果として寿命延長に伴う老化関連の脂質蓄積(脂質滴への蓄積)を引き起こしていることを明らかにしました。 |
| 2.結果 |
| 2.1.シトルリンはC. elegans(線虫) において脂質リモデリングと寿命延長を協調的に促進する |
| ヒトにおいて、加齢に伴う代謝の劇的な変化は40歳という転換期に生じ(27)、これは肥満のリスクに関連している(28)。C. elegans のライフサイクルは、4つの幼虫期(L1~L4)と2つの成虫期を経て進行する。若齢成虫(YA)は5日間ほど産卵を行い、その後、死に至るまでの老齢成虫(OA)期へと移行する(図1a)。線虫における老齢成虫期への移行は、ヒトにおける40歳時の代謝変化を模倣している可能性がある。若齢成虫と比較して、老齢成虫では、LipidTOX染色および2つの脂質滴(LD)マーカーであるDHS-3::GFP {ldrIs1 [dhs-3p::dhs-3::gfp+unc-76(+)]} とPLIN-1::mCherry {ldrIs2 [plin-1p::plin-1::mCherry+unc-76(+)]} によって示される脂質滴サイズの有意な増大が認められた(図1b-d)(29,30)。薄層クロマトグラフィー/ガスクロマトグラフィー(TLC/GC)による脂質定量分析からも、老齢成虫は若齢成虫よりも高レベルのトリグリセリド(TAG)を蓄積していることが確認された(図1e)。特筆すべきことに、この加齢に伴う脂質蓄積の増大は、低脂肪食である大腸菌HT115を給餌された線虫においても生じており(図1b–e)(31) 、これは食事による影響ではなく、内在性の代謝リモデリングであることを示唆している。以上のデータは、脂質滴の拡大とトリグリセリドの蓄積を特徴とする、加齢に伴う脂質リモデリングの存在を実証するものである。 |
| 図1. シトルリンは、健康寿命に関わる加齢性の脂質蓄積を促進する。 |
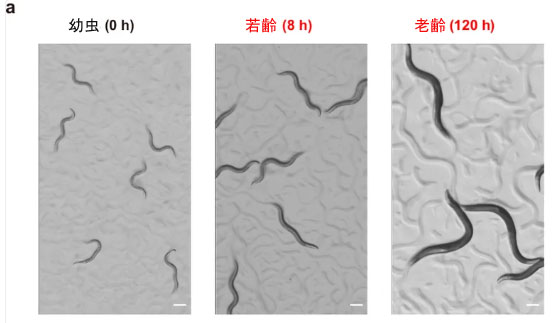 |
a )C. elegansの幼虫期4(L4)、若齢成虫(YA)、および老齢成虫(OA)の代表的な画像。スケールバー:200 μm。 |
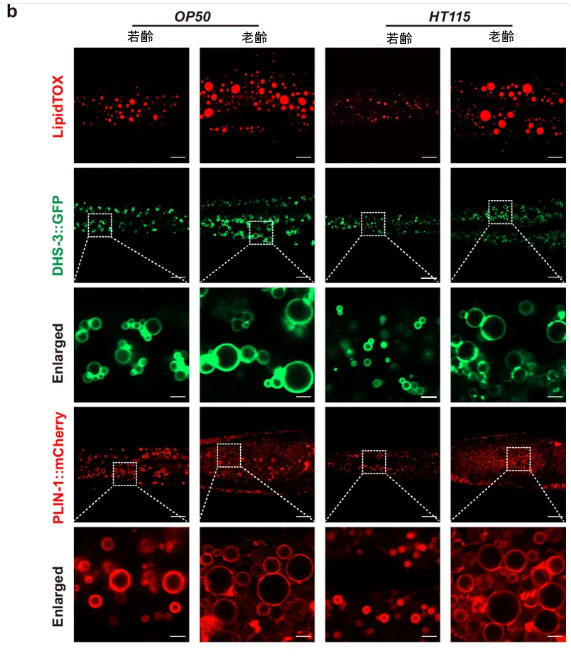 |
| b) LipidTOX、DHS-3::GFP、またはPLIN-1::mCherryを用いて可視化した、若齢成虫および老齢成虫の野生型(N2)個体における脂質滴(LD)。スケールバー:2 μm(拡大図)、10 μm(その他)。 |
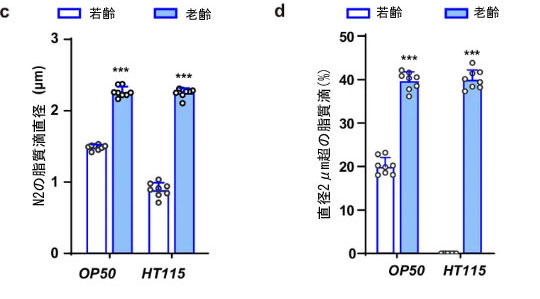 |
c, d )(b)に基づく脂質滴の直径(c)および直径2 μm超の脂質滴の割合(d)の定量結果。データは平均値±標準偏差(SD)で示し、各群につき代表的な個体8匹(n = 8)を用いた。*** P < 0.001(若齢成虫対老齢成虫、Studentのt検定)。
|
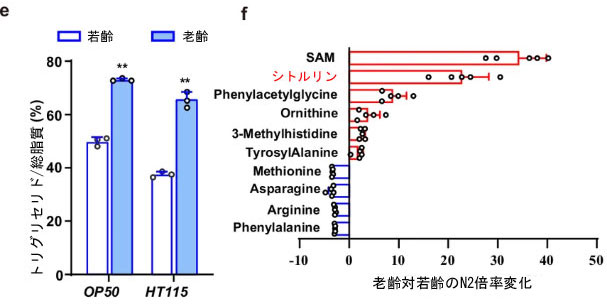 |
e )TLC/GCにより測定した総脂質(TAG + PL)中のトリグリセリドの割合。データは平均値±SDで示し、生物学的反復3回(n = 3)の結果である。** P < 0.01(若齢成虫対老齢成虫、Studentのt検定)。 f )メタボロミクス解析により特定された、加齢に伴い有意に変化したアミノ酸またはその誘導体。SAM:S-アデノシルメチオニン。データは平均値±SDで示し、生物学的反復5回(n = 5)の結果である。 |
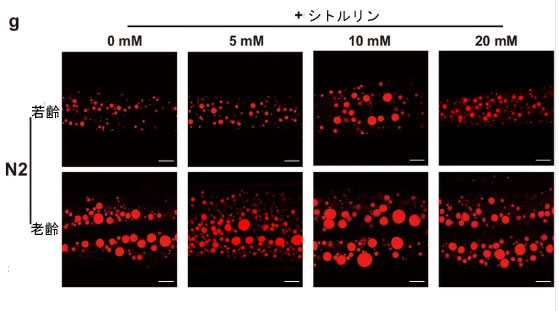 |
| g )異なる濃度のシトルリン(Cit)を添加した個体のLipidTOX染色像。スケールバー:10 μm。 |
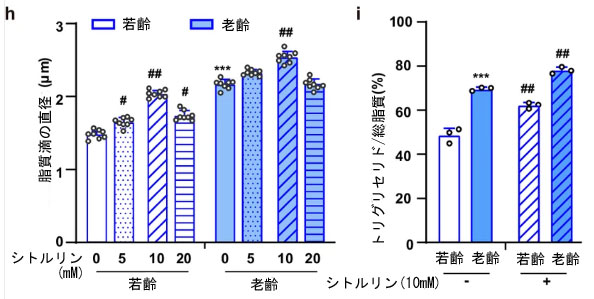 |
h) (g)に基づく脂質滴直径の定量結果。データは平均値±SDで示し、各群につき代表的な個体8匹(n = 8)を用いた。** P < 0.001(若齢成虫対老齢成虫、Studentのt検定)。 # P < 0.05、## P < 0.01(Cit対対照群、Studentのt検定)。 i )TLC/GC法による総脂質(トリグリセリド + PL)中のトリグリセリドの割合。データは平均値 ± 標準偏差(SD)で示し、n = 3(生物学的反復)。***P < 0.001(若齢成虫対老齢成虫、Studentのt検定)。##P < 0.01(Cit対対照、Studentのt検定)。 |
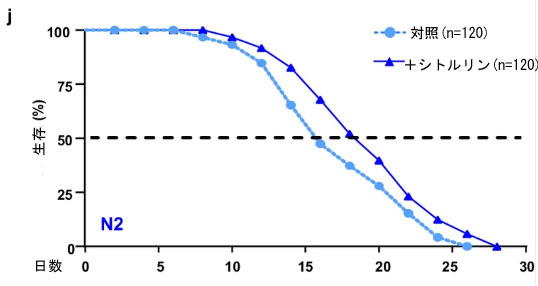 |
| j )10 mMシトルリン(Cit)の有無におけるNGMプレート上での生存曲線(L4期から観察)。n = 120匹。 |
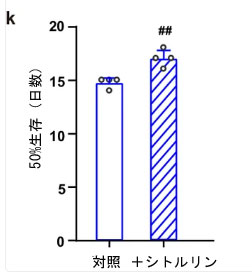 |
| k )(j) に基づく50%生存時間。データは平均値 ± SDで示し、n = 4(生物学的反復)。##P < 0.01(シトルリン対対照、Studentのt検定)。 |
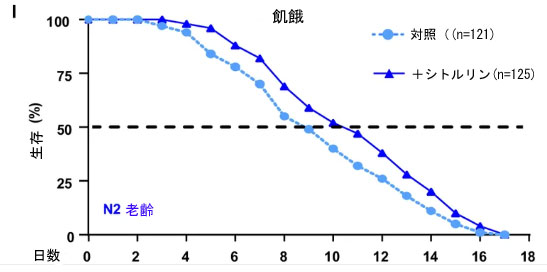 |
l)10 mMシトルリンの有無における、飢餓条件(M9緩衝液)下での老齢成虫個体の生存曲線。n = 測定した個体総数。 m) (l) に基づく50%飢餓生存時間。データは平均値 ± SDで示し、n = 4(生物学的反復)。#P < 0.05(Cit対対照、Studentのt検定)。詳細なp値を含む元データは、Source Dataファイルとして提供されている。 |
| 加齢に伴う脂質リモデリングの要因を解明するため、定量メタボロミクス解析を行った(図1f)。その結果、若齢個体と老齢個体の間で存在量に有意差のある代謝産物が計156種類同定された(補足図1a, bおよび補足データ1)。これらの中で、63種類のアミノ酸およびその誘導体が老齢個体において増加していた(図1fおよび補足図1b)。老齢個体で最も増加していた代謝産物の上位2つはS-アデノシルメチオニン(SAM)とシトルリンであり(図1f)、またメチオニンとアルギニンは以前の研究でC. elegansの寿命を延ばすことが示されていたため(32)、我々はこれらの代謝産物に着目した。我々は、老齢個体における加齢に伴う脂質蓄積は特定の代謝産物の増減に起因するのではないかと考え、次のような仮説を立てた。すなわち、当該代謝産物を食事として補給すれば、若齢個体では脂質蓄積が促進され、あるいは老齢個体では脂質蓄積が抑制されるはずであり、逆にその量を減少させれば、それとは逆の効果が生じるはずである、というものである。 |
| 老齢個体ではメチオニンおよびアルギニンのレベルが低下していましたが(図1f)、これらを食事から補給しても、若齢および老齢個体のいずれにおいても脂質蓄積には全く影響が見られませんでした(補足図1c, d)。このことから、老齢個体における脂質蓄積の増加は、メチオニンやアルギニンのレベル低下に起因するものではない可能性が示唆されます。対照的に、S-アデノシルメチオニン(補足図1c, d)やシトルリン(図1g, h)を食事から補給すると、若齢および老齢個体の双方で脂質蓄積が促進されました。一方、オルニチンは老齢個体でレベルが上昇していたにもかかわらず(図1f)、食事からの補給による影響は認められませんでした(補足図1c, d)。興味深いことに、C. elegansにおいてsams-1(S-アデノシルメチオニン合成酵素)のノックダウンやノックアウトによりS-アデノシルメチオニンを欠乏させると、寿命は延びるものの(33,34)、脂質滴の蓄積は増加することが示されています(35–37)。つまり、S-アデノシルメチオニンの過剰と欠乏の双方が脂質蓄積を招く可能性があるため、今回の解析対象からはS-アデノシルメチオニンを除外しました。 |
| 次に、ヒトにおけるシトルリンに関する既報データを解析したところ、若年者と比較して高齢者では血清・血漿中のシトルリン濃度が有意に上昇していることが明らかになりました(Supplementary Data 2)(38–50)。このことは、シトルリンが加齢に関連する役割を担っている可能性を示唆していますが、脂質代謝と寿命とを結びつける役割については不明でした。そこで我々はシトルリンに着目しました。10 mMのシトルリンを添加すると、若齢および高齢の線虫の双方において、脂質滴のサイズとトリアシルグリセロールレベルが有意に増加した一方(Fig. 1g–i)、発生には影響が及ばなかったため(Supplementary Fig. 1e, f)、寿命への影響を調べる以降のすべての実験においてこの濃度を用いました。シトルリンの投与により、若齢成虫および老齢成虫の線虫の双方でシトルリンレベルが有意に上昇しました(Supplementary Fig. 1g)。特筆すべきことに、シトルリンは通常飼育条件および飢餓条件のいずれにおいても線虫の寿命延長を促進し、50%生存期間はそれぞれ14.5 ± 0.5日から17.0 ± 0.8日へ、7.3 ± 0.5日から8.3 ± 0.5日へと有意に延長しました(Fig. 1j–m)。以上の結果を総合すると、シトルリンは脂質のリモデリングと寿命延長を協調的に制御する、新たに同定された代謝産物であることが示唆されます。 |
| 2.2.シトルリン生合成の遺伝的阻害は、脂質のリモデリングおよび寿命の延長を抑制する |
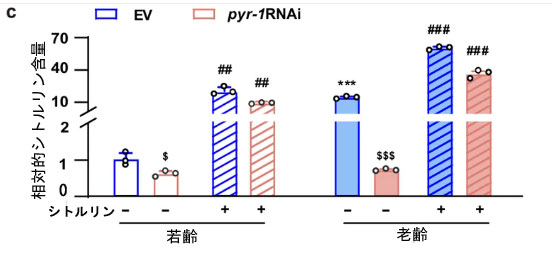
| シトルリンは、尿素回路においてオルニチン・トランスカルバミラーゼ(OTC)を介して合成される(51)(図2a)。一方、C. elegans(線虫)においてシトルリン生合成系が存在するかどうかは不明であった。Wormbase(www.wormbase.org)においてヒトオルニチン・トランスカルバミラーゼ(P00480)を用いたBLAST検索を行った結果、C. elegansにおける唯一のホモログとしてPYR-1が同定された(図2a)。RNAiによるpyr-1のノックダウンは、pyr-1のmRNA発現量(図2b)および老齢処理した線虫におけるシトルリン量(図2c)を有意に減少させた。機能喪失変異体であるpyr-1(cu8)においても同様の結果が認められたことから(図2d)、PYR-1/OTCがシトルリン生合成に関与しており、この経路がC. elegansにおいても保存されていることが示唆された。 |
| 図2. シトルリン生合成の機能不全は、加齢に伴う脂質蓄積および健康寿命に悪影響を及ぼす |
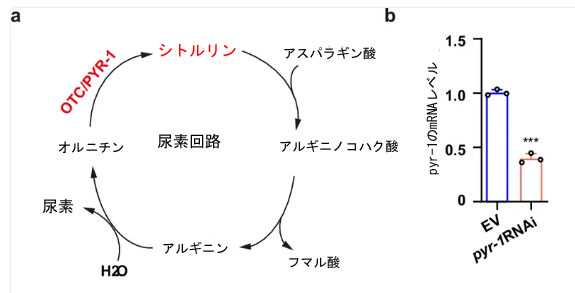 |
a )尿素回路の経路。OTC:オルニチン・トランスカルバミラーゼ。 b )示された線虫における pyr-1の相対的mRNAレベル。データは平均値±標準偏差(SD)で示し、n=3(生物学的反復)。***P < 0.001(若齢対老齢、Studentのt検定)。 |
 |
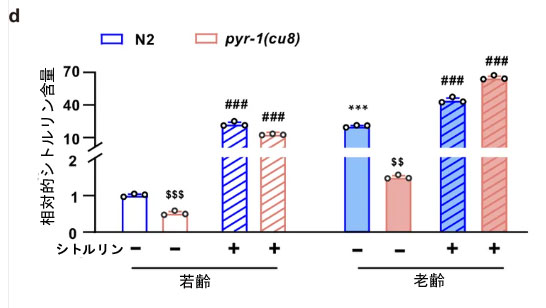 |
| c, d )若齢および老齢線虫における相対的シトルリンレベル。データは平均値±SDで示し、n=3(生物学的反復)。***P < 0.001(若齢対老齢、Studentのt検定)。###P < 0.001(シトルリン対対照、Studentのt検定)。$P < 0.05, $$P < 0.01, $$$P < 0.001(*pyr-1* 対野生型、Studentのt検定)。 |
 |
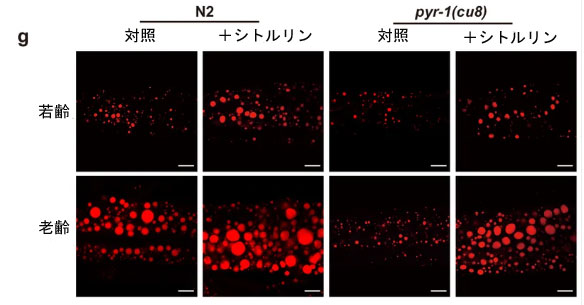 |
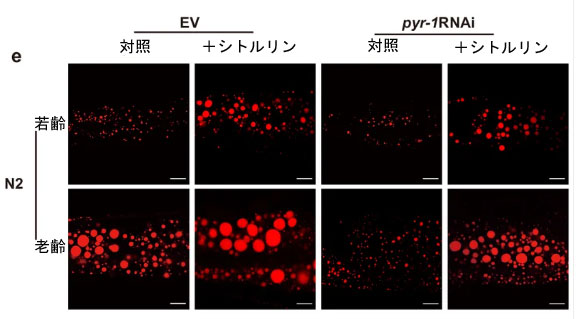
| e, g )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
 |
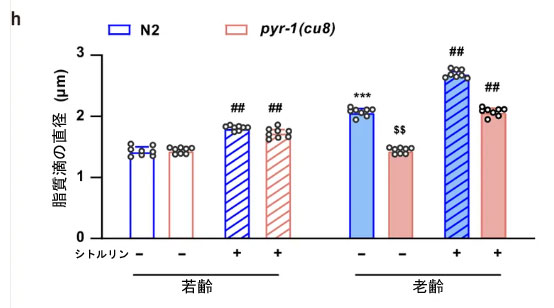 |
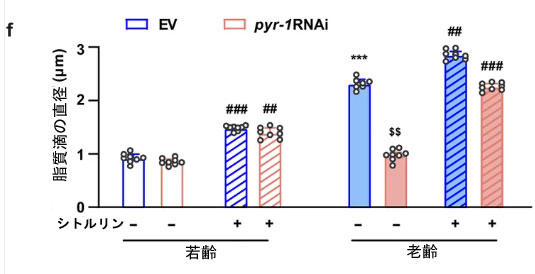
| f, h )それぞれ(e)および(g)に基づく脂質滴の直径の定量結果。データは平均値±SDで示し、n=8(各群の代表的な個体)。***P < 0.001(若齢対老齢、Studentのt検定)。##P < 0.01, ###P < 0.001(Cit対対照、Studentのt検定)。$$P < 0.01(*pyr-1* 対野生型、Studentのt検定)。 |
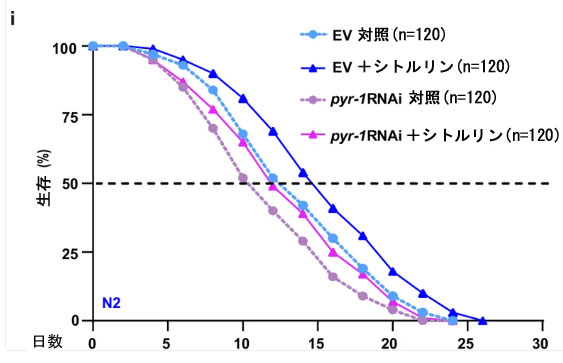 |
| i )10 mMシトルリン(Cit)の有無におけるRNAiプレート上での生存曲線。n=120匹。 |
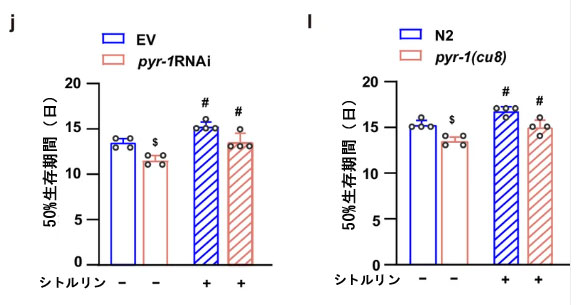 |
j )(i)に基づく50%生存時間。データは平均値±SDで示し、n=4(生物学的反復)。 #P < 0.05(シトルリン対対照群、Studentのt検定)。$P < 0.05(pyr-1対野生型、Studentのt検定) l )(k)に基づく50%飢餓生存時間。データは平均値 ± 標準偏差(SD)で示す。n = 4(生物学的反復)。#P < 0.05(シトルリン対対照群、Studentのt検定)。$P < 0.05(pyr-1対野生型、Studentのt検定)。 |
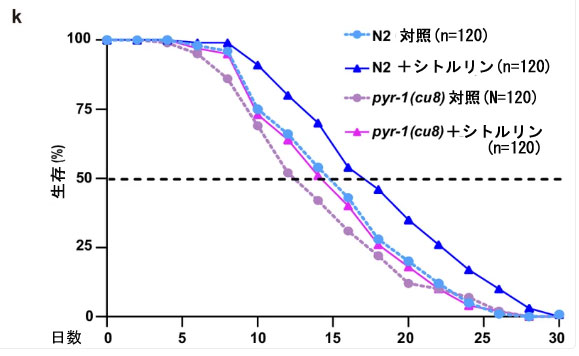 |
| K) 10 mMシトルリン(Cit)の有無におけるNGMプレート上での生存曲線(L4期から観察)。n = 120匹。 |
| 若齢個体において、pyr-1RNAiは脂質蓄積に目立った影響を及ぼさなかったものの、老齢個体では加齢に伴う脂質滴の肥大化と脂質蓄積を完全に抑制した。この表現型は、シトルリンの補充によって完全に回復した(図2e、f)。同様に、pyr-1(cu8) 変異体も pyr-1RNAi個体と同様の表現型を示したことから(図2g、h)、PYR-1が実際にシトルリン生合成に関与していることが示唆された。さらに重要なことに、RNAiまたは変異によるPYR-1の機能不全は、いずれの場合も対照群(それぞれEVまたは野生型(N2))と比較して寿命の短縮をもたらしたが、この短縮は、通常の培養条件下および飢餓条件下の双方において、シトルリンの補充により完全に回復した(図2i–l)。以上の知見は、シトルリンが寿命延長に向けた脂質代謝の再構築を駆動する因子であることを、さらに裏付けるものである。 |
| 2.3.MXL-3はシトルリンを介して脂質代謝を再構築し、寿命を延長させる |
| (訳者注:MXL-3はC. elegans(線虫)や哺乳類に存在するbHLH型転写因子の一種で、栄養状態や脂肪代謝、酸化ストレス応答に関与するタンパク質です)
シトルリンが寿命延長のためにどのように脂質代謝の再構築を制御しているかを調べるため、若齢成虫と老齢成虫のC. elegansを用いてトランスクリプトーム解析を行った。老齢線虫では脂質の蓄積が増加していたため、脂質代謝に関与する遺伝子に着目した。比較解析の結果、老齢線虫では pod-2、fasn-1、dgat-2、mboa-2 などの脂質合成遺伝子の発現が上昇している一方で、atgl-1 や acox-1.3 などの脂質分解・酸化に関わる遺伝子の発現は低下していることが明らかになった(図3aおよび補足データ3)。これらの結果は、定量PCR(qPCR)によっても確認された(補足図2a)。我々や他の研究グループは以前、nhr-49(52,53)、nhr-80(54,55)、pha-4(56)、daf-16(57)、mxl-3(58,59) といった複数の転写因子がC. elegans の脂質代謝に関与していることを報告しており、これらの転写因子の発現も老齢線虫において上昇していた(図3b)。活性化したNHR-80やNHR-49は、脂質であるオレオイルエタノールアミド(OEA)やジホモ-γ-リノレン酸(DGLA)を介して寿命を延長させる。DAF-16はインスリン/IGF-1シグナルやその他のシグナルに関与し、寿命や脂質代謝を制御する(61,62)。PHA-4は、食事制限による寿命延長を媒介する(63)。そこで我々はまず、シトルリンおよび加齢に伴う脂質代謝の再構築に関連して、これらの因子の挙動を検討した。 |
| 図3. MXL-3は、シトルリンによって誘発される加齢に伴う脂質蓄積および健康寿命を制御する |
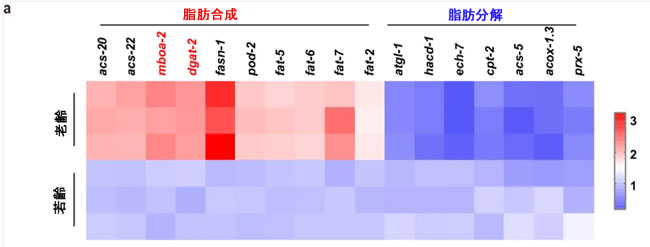 |
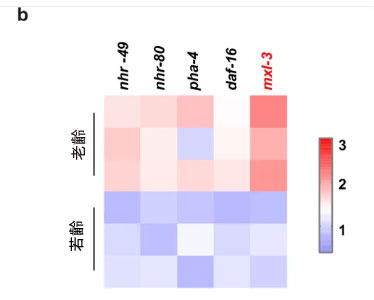 |
| a, b )老齢および若齢の線虫における、脂質合成/脂質分解関連遺伝子(a)および脂質代謝調節転写因子(b)の発現レベル。 |
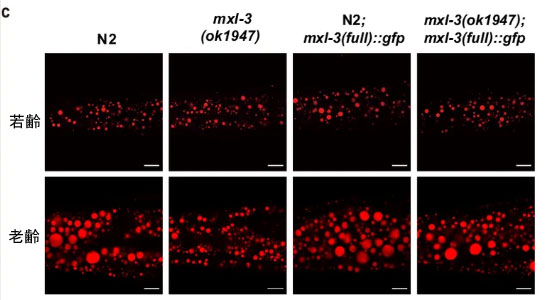 |
| c )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
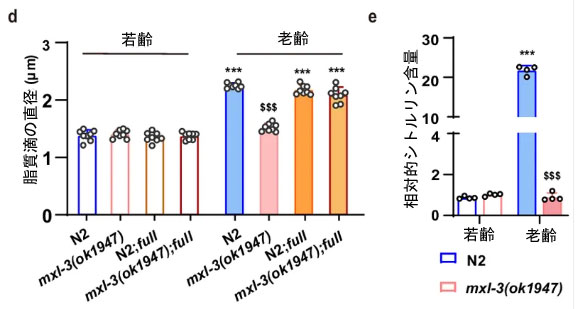 |
d )(c) に基づく脂質滴直径の定量結果。データは平均値±標準偏差で示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。$$$P < 0.001(mxl-3対野生型、Studentのt検定)。 e )メタボロミクス解析による若齢および老齢線虫の相対的シトルリンレベル。データは平均値±SDで示し、生物学的反復4回(n = 4)を行った。***P < 0.001(若齢対老齢、Studentのt検定)。$$$P < 0.001(mxl-3対野生型、Studentのt検定)。 |
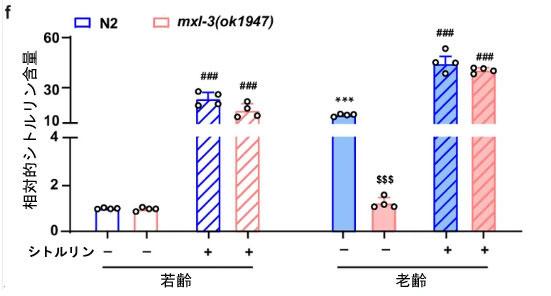 |
| f )LC/MS解析による線虫の相対的シトルリンレベル。データは平均値±SDで示し、生物学的反復4回(n = 4)を行った。***P < 0.001(若齢対老齢、Studentのt検定)。###P < 0.001(シトルリン対対照、Studentのt検定)。$$$P < 0.001(mxl-3対野生型、Studentのt検定)。 |
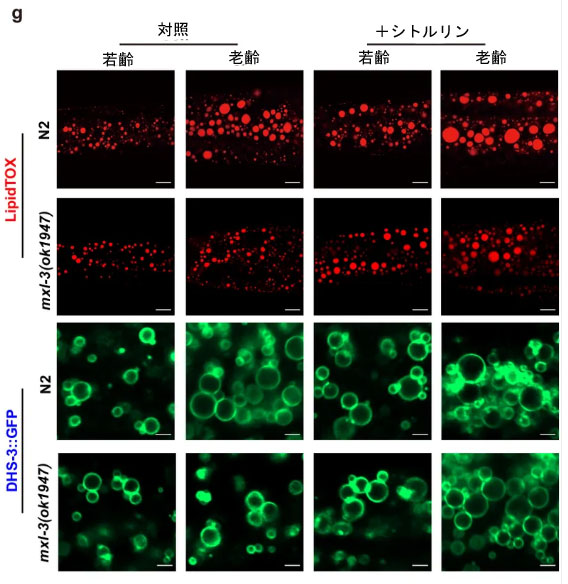 |
| g )LipidTOXおよびDHS-3::GFPにより可視化した線虫内の脂質滴。スケールバー:10 μm(LipidTOX)、2 μm(DHS-3::GFP)。 |
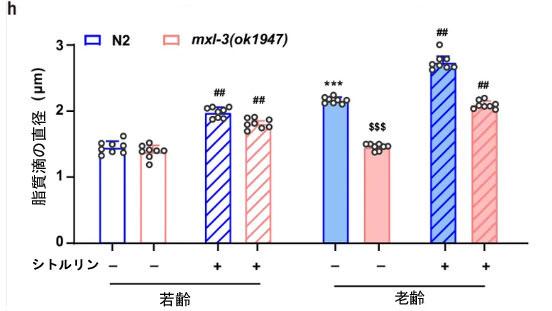 |
| h )(g) に基づく脂質滴直径の定量結果。データは平均値±SDで示し、各群につき代表的な個体8匹(n = 8)を用いた。 ***P < 0.001(若齢対老齢、Studentのt検定)。##P < 0.01(シトルリン対対照、Studentのt検定)。$$$P < 0.001(mxl-3対野生型、Studentのt検定)。 |
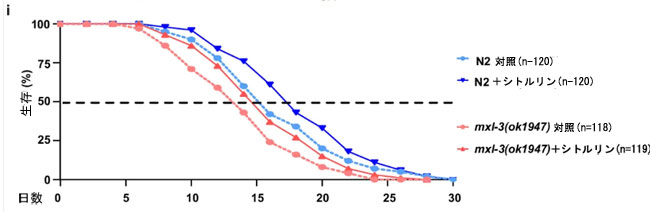 |
| i )10 mMシトルリンの有無におけるNGMプレート上での生存曲線(L4期から観察)。n = 観察した線虫の総数。 |
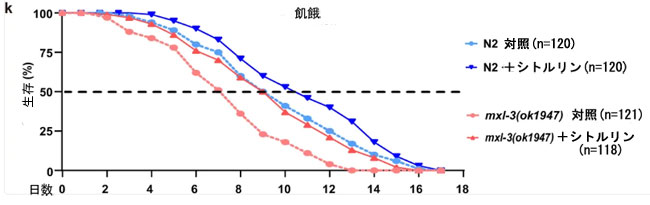 |
| k )10 mMシトルリンの有無における飢餓条件(M9)下での老齢線虫の生存曲線。n = 観察した線虫の総数。 |
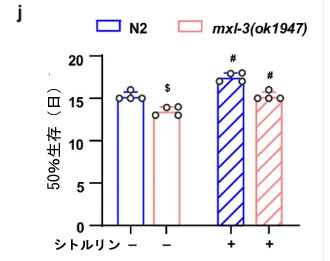 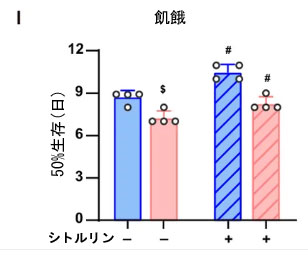 |
j )(i)に基づく50%生存時間。データは平均値 ± SDで示し、n = 4(生物学的反復)。#P < 0.05(シトルリン対対照、Studentのt検定)。$P < 0.05(mxl-3対野生型、Studentのt検定)。 l )(k)に基づく飢餓条件下での50%生存時間。データは平均値 ± SDで示し、n = 4(生物学的反復)。#P < 0.05(Cit対対照、Studentのt検定)。$P < 0.05(mxl-3対野生型、Studentのt検定)。 |
| 野生型N2株と同様に、nhr-49(nr2041)、nhr-80(tm1011)、pha-4(zu225)、hlh-30(tm1978)、およびdaf-16(mu86)の機能喪失変異体においても、若齢期と比較して老齢期には脂質蓄積の有意な増加が認められた(補足図2b, c)。このことは、これらの因子が加齢に伴う脂質蓄積には関与していない可能性を示唆している。インスリン/IGF-1シグナル伝達経路および食事制限経路は、寿命を制御する機構として、C. elegansから哺乳類に至るまで保存されている。野生型N2株とは異なり(図1j, 2i)、インスリン/IGF-1受容体の変異体であるdaf-2(e1370)株に対しては、pyr-1 RNAiも食事へのシトルリン添加も寿命に影響を及ぼさなかった(64)(補足図2d)。さらに、食事制限の遺伝的モデルであるeat-2(ad465)株の寿命も、食事へのシトルリン添加によっては延長されなかった(65)(補足図2e)。したがって、寿命延長を伴うシトルリン誘発性の脂質蓄積は、これらのシグナル伝達経路とは独立したものである可能性がある。 |
| 一方、若年成虫期においては、野生型N2線虫とmxl-3(ok1947)変異体線虫の間で脂質滴のサイズに差は見られなかったものの、老齢成虫期に入ると、野生型N2線虫とは異なり、mxl-3(ok1947)線虫では脂質蓄積量に変化が生じなかった(図3c, d)。加齢に伴う脂質蓄積におけるMXL-3の役割を調べるため、mxl-3(full)::gfpコンストラクトを作製し、野生型N2線虫およびmxl-3(ok1947)線虫に導入した。このコンストラクトは、野生型N2およびmxl-3(ok1947)変異体のいずれの背景においても、若齢期の線虫の脂質蓄積には影響を及ぼさなかった。しかし、老齢期のmxl-3(ok1947)線虫においては、野生型N2線虫と同様の状態へと脂質蓄積を回復(レスキュー)させることができた(図3c, d)。以上の結果から、MXL-3は加齢に伴う脂質のリモデリングに関与する因子であることが示唆される。 |
| 次に、MXL-3が脂質代謝の再構築や寿命延長のためにシトルリンを制御しているかどうかを検討した。脂質に関する表現型と同様に、シトルリン量についても、野生型N2株とは異なり、若年成虫および老齢成虫のmxl-3(ok1947)変異体線虫では明らかな変化は認められなかった(図3e)。さらに、qPCR解析により、老齢期のmxl-3(ok1947)変異体線虫では野生型N2株と比較してpyr-1 mRNA量が減少していることが示された(補足図3a)。そこで、pyr-1のプロモーターにGFP(緑色蛍光タンパク質)を融合させたコンストラクト(pyr-1p::gfp)を作製し(補足図3b)、野生型N2株およびmxl-3(ok1947)変異体線虫に導入した。qPCRの結果と同様に、老齢期のmxl-3(ok1947)変異体線虫においても、PYR-1p::GFPの相対蛍光強度が低下していた(補足図3c, d)。これらの結果は、MXL-3がPYR-1の発現を制御することでシトルリン量に影響を及ぼしている可能性を示唆している。さらに、シトルリンを食事として補給したところ、mxl-3(ok1947)変異体線虫におけるシトルリン量が大幅に増加した(図3f)。それと同時に、LipidTOX染色やDHS-3::GFP(図3g, h)およびPLIN-1::mCherry(補足図3e, f)による観察から示されるように、脂質蓄積量も野生型と同等のレベルまで回復した。以上の結果は、MXL-3がシトルリン産生を制御することで、加齢に伴う脂質代謝を再構築しているという考えを裏付けるものである。 |
| 老齢期において、mxl-3(ok1947)変異体は野生型N2株と比較してシトルリンレベルおよび脂質蓄積量が低く、MXL-3がシトルリンによる寿命延長に関与している可能性が示唆されました。以前の報告(58)とは異なり、本研究におけるmxl-3(ok1947)変異体の寿命は、通常の培養条件および飢餓条件のいずれにおいても、野生型N2株より明らかに短いものでした(図3i–l)。これと整合するように、シトルリンの経口投与は野生型N2株の寿命を延長させただけでなく、さらに重要な点として、両条件においてmxl-3(ok1947)変異体の短縮した寿命を正常なレベルまで回復させました(図3i–l)。以上の結果を総合すると、MXL-3は寿命延長に寄与するシトルリン誘導性の脂質蓄積を制御していることが示唆されます。 |
| 2.4.加齢はMXL-3の発現およびリソソームへの移行を誘発する |
| (訳者注:リソソーム(ライソソーム)は、真核生物の細胞内にある膜に囲まれた小さな袋状の[細胞小器官(オルガネラ)です。タンパク質、多糖、脂質などの不要な物質や、古くなった細胞小器官を取り込んで分解します。)
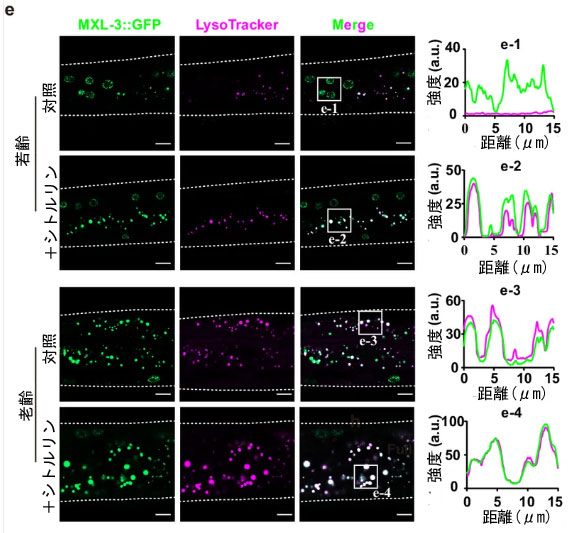
前述の通り、老齢個体ではmxl-3の転写が亢進していた(図3bおよび補足図2a)。GFP蛍光およびウェスタンブロット解析の結果、対照条件およびシトルリン処理条件のいずれにおいても、若齢個体と比較して老齢個体ではMXL-3::GFP {wgIs745 [mxl-3::TY1::EGFP::3 × FLAG + unc-119(+)]} の発現が増加していることが一貫して示された(図4a–d)。YA個体において、MXL-3::GFPは主に核に発現していたが、細胞質にも認められ、リソソームでの発現は低かった。興味深いことに、加齢に伴いMXL-3::GFPはリソソームへ顕著に移行し、この移行はシトルリン処理によってさらに促進された(図4e–g)。 |
| 図4. MXL-3はシトルリンに応答してリソソームへ移行し、脂質蓄積および健康寿命に関与する |
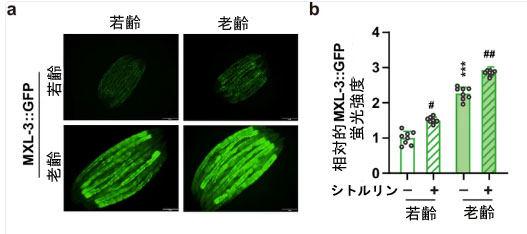 |
| a, b )MXL-3::GFPの蛍光強度 (a) および定量結果 (b)。スケールバー:200 μm。データは平均値 ± 標準偏差(SD)で示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。#P < 0.05、##P < 0.01(Cit対コントロール、Studentのt検定)。 |
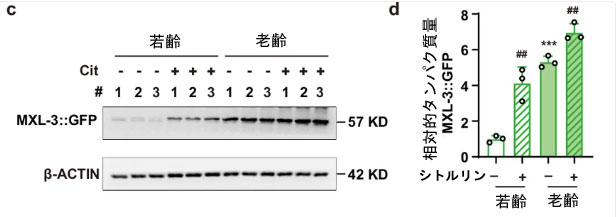 |
c )抗GFP抗体を用いたMXL-3::GFPのウェスタンブロット解析(n = 3、3つの生物学的反復 #1–3)。ローディングコントロールとしてβ-アクチン(β-ACTIN)を使用した。 d )(c) に基づくMXL-3::GFP量の定量解析。データは平均値 ± SDで示し、3つの生物学的反復(#1–3)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。##P < 0.01(Cit対コントロール、Studentのt検定)。 |
 |
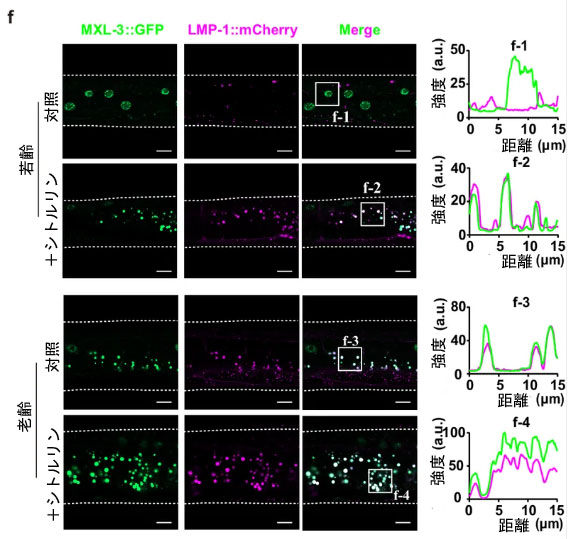 |
| e, f )左:Lysotrackerで染色 (e) またはLMP-1::mCherryで標識 (f) したリソソームに対するMXL-3::GFPの局在。スケールバー:10 μm。右:高倍率領域(e-1–4およびf-1–4)における標識シグナルの強度プロファイル。左図で示されたリソソームとMXL-3::GFPの局在関係を表している。 |
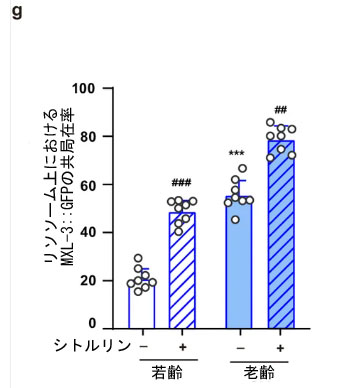 |
| g )(e) に基づく、リソソームとMXL-3::GFPの共局在の定量結果。データは平均値 ± SDで示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。 ##P < 0.01, ###P < 0.001(シトルリン対コントロール、Studentのt検定)。 |
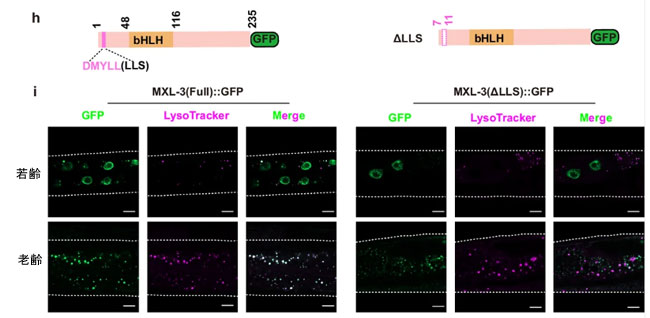 |
h )全長MXL-3(Full)::GFPおよびリソソーム局在シグナル(LLS)欠失型MXL-3(ΔLLS)::GFPの模式図。LLSおよびbHLHドメインの位置が示されている。 i )Lysotrackerで染色したリソソームに対する、全長型およびLLS欠失型MXL-3::GFPの局在。スケールバー:10 μm。 |
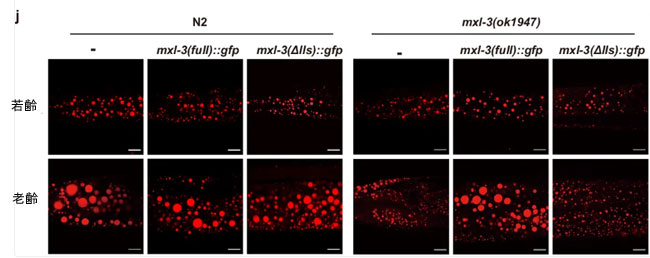 |
| j )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
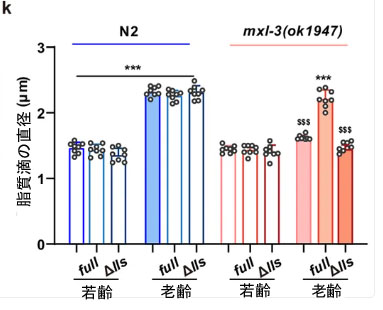 |
| k (j)に基づく脂質滴直径の定量結果。データは平均値±標準偏差(SD)で示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。$$$ P < 0.001(示された系統対野生型、Studentのt検定)。 |
| MXL-3のリソソームへの移行を調べるため、我々は野生型N2およびmxl-3(ok1947)変異体バックグラウンドにおいて、リソソーム局在シグナル(DMYLL)を欠くMXL-3(∆LLS)::GFP {unc-119(ed9); kunEx510[mxl-3p::mxl-3(∆lls)::6×his::gfp] + unc-119(+)} と、対照となるMXL-3(Full)::GFP {unc-119(ed9); kunEx521[mxl-3p::mxl-3(full)::6×his::gfp] + unc-119(+)} (66)を発現するトランスジェニック線虫系統を作製した(図4h)。MXL-3(Full)::GFPとは異なり、MXL-3(∆LLS)::GFPはリソソームへ局在する能力を失っただけでなく(図4i)、さらに重要な点として、老齢期におけるmxl-3(ok1947)変異体線虫の脂質表現型をレスキューすることもできなかった(図4j, k)。このことは、当該モチーフ(LLS)が、加齢に伴う脂質蓄積およびリソソーム局在という両方の機能において必要であることを示唆している。 |
| 2.5.アミノ酸残基228~235は、寿命延長に関与する加齢に伴う脂質蓄積の制御において、MXL-3の機能を決定づける |
| 前述の通り、加齢に伴うシトルリンの蓄積がMXL-3のリソソームへの移行を促進し得ることから、我々はシトルリンがMXL-3に結合し得るかどうかを検討した。AlphaFoldプログラムを用いてMXL-3の構造予測を行ったところ、基質であるシトルリンの結合候補部位が特定された。続いて、相互作用に関与し得るアミノ酸残基(AA)の結合エネルギーおよび対応する水素結合距離に基づき、結合候補部位のうち上位のものをいくつか選定し、機能検証を行った(図5a、bおよび補足図4a)。一方、AlphaFoldによる構造予測の結果、MXL-3は細胞質および核に局在する転写因子であると予測され、N末端側のリソソーム局在化シグナル(LLS)(AA7~11)(図4h)および塩基性ヘリックス・ループ・ヘリックス(bHLH)ドメイン(AA48~116)(図5c)を有することが示された。 |
| 図5. MXL-3のAA228-235モチーフは、シトルリン結合、ならびに脂質蓄積および健康寿命における機能を決定する |
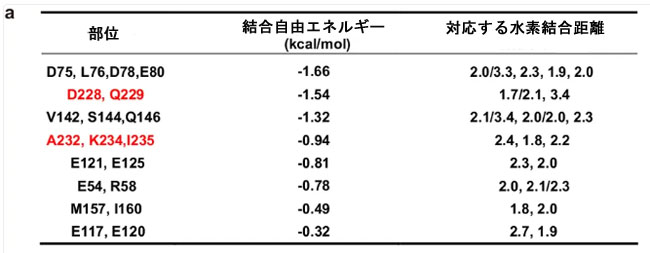 |
| a )MXL-3とシトルリンの推定結合部位、および対応する結合エネルギーと水素結合距離を決定した。 |
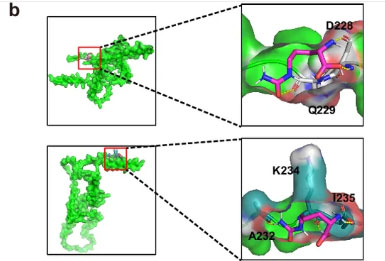 |
| b )MXL-3とシトルリンの分子ドッキング解析(結合ポケットおよび主要な相互作用の予測)。 |
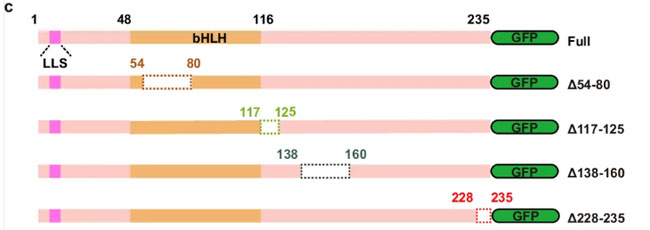 |
| c )全長MXL-3(Full)::GFP、および欠失変異体MXL-3(Δ54-80)::GFP、MXL-3(Δ117-125)::GFP、MXL-3(Δ138-160)::GFP、MXL-3(Δ228-235)::GFPタンパク質の模式図。 |
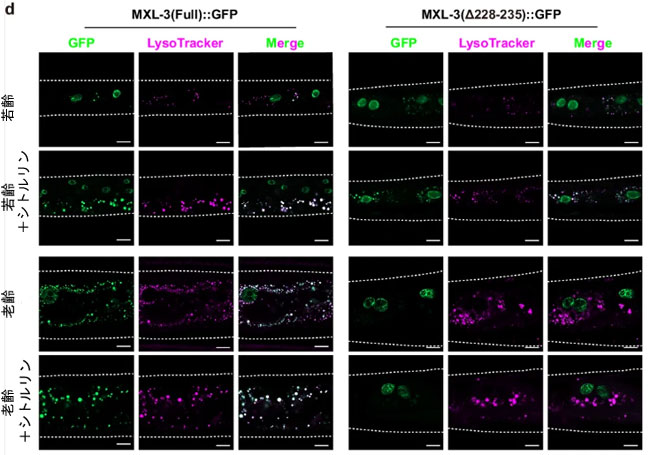 |
| d )Lysotrackerで染色したリソソームに対する、全長およびΔ228–235 MXL-3::GFPの局在。スケールバー:10 μm。 |
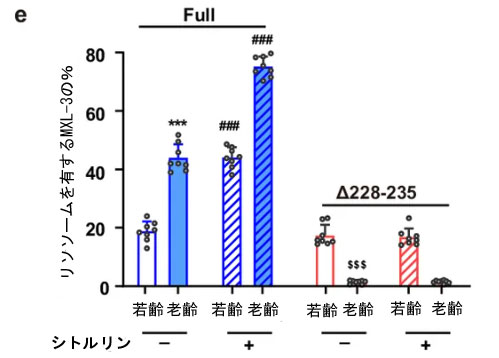 |
| e )(d)におけるMXL-3::GFPとリソソームの共局在の定量化。データは平均値±標準偏差(SD)で示し、各群n=8匹の代表的な個体を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。###P < 0.001(シトルリン対対照、Studentのt検定)。$$$P < 0.001(MXL-3(Δ228-235)::GFP対MXL-3(Full)::GFP、Studentのt検定)。 |
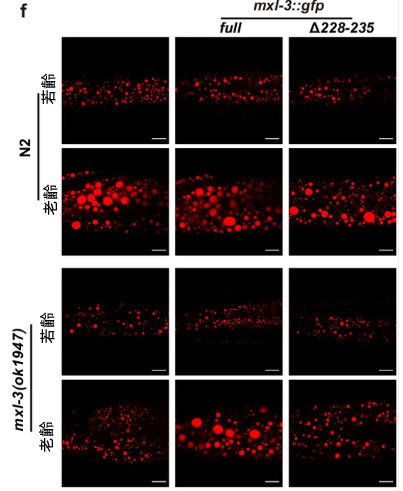 |
| f )固定した線虫のLipidTOX染色。スケールバー:10 μm。 |
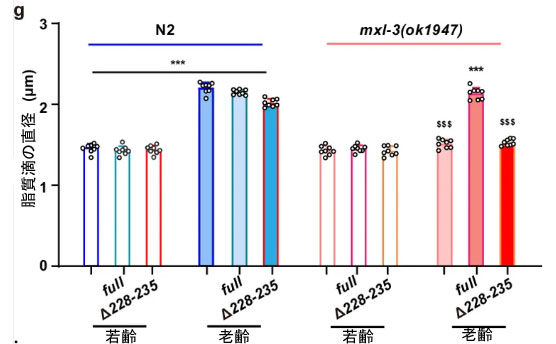 |
| g )(f)における脂質滴直径の定量化。データは平均値±標準偏差(SD)で示し、各群n=8匹の代表的な個体を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。$$$P < 0.001(示された系統対野生型、Studentのt検定)。 |
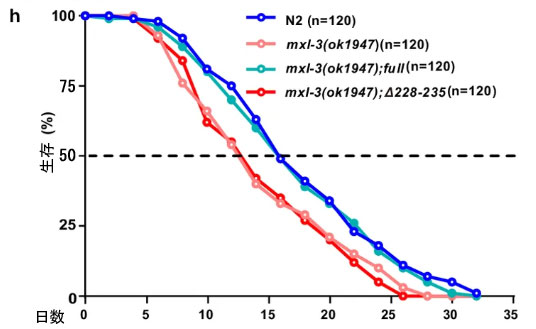 |
| h)NGMプレート上での生存曲線(L4期から観察)。 n = 120匹の線虫。 |
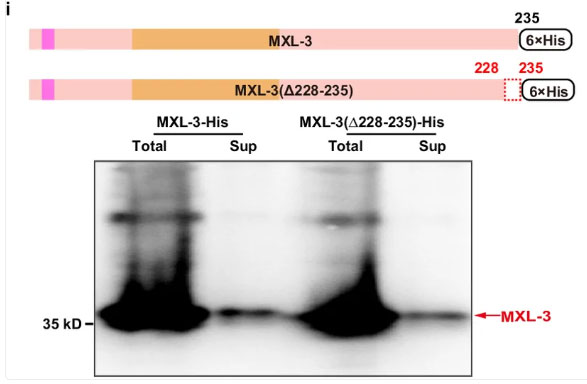 |
| i )Hisタグを融合させたMXL-3全長タンパク質(MXL-3)および短縮型タンパク質(MXL-3(Δ228-235 AA))のコンストラクトの模式図、ならびに哺乳類293F細胞で発現させたタンパク質の抗His抗体を用いたウェスタンブロット解析。Total:全細胞ライセート、Sup:可溶性上清。 |
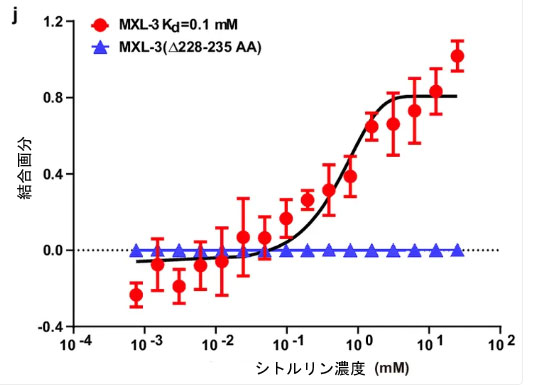 |
| j )MST-Nanotemperを用いて測定した、精製MXL-3全長タンパク質および短縮型MXL-3(Δ228–235 AA)タンパク質とシトルリンとの結合曲線。データは平均値 ± 標準偏差(SD)で示し、n = 4(生物学的反復)。 |
| これら候補となる結合部位の機能およびシトルリンに対する応答性を検証するため、該当するアミノ酸配列を欠失させた数種類のトランスジェニック線虫を作製した(図5c)。野生型N2の遺伝的背景において、MXL-3(Full)::GFPの発現産物は、加齢時またはシトルリン処理下で、その大部分がリソソームへと局在変化した。MXL-3(∆54-80)::GFP {unc-119(ed9);kunEx522[mxl-3p::mxl-3(∆54-80)::6 × his::gfp] + unc-19( + )}、MXL-3(∆117-125)::GFP {unc-119(ed9);kunEx523[mxl-3p::mxl-3(∆117-125)::6 × his:: gfp] + unc-119(+)}、およびMXL-3(∆138-160)::GFP {unc-119(ed9);kunEx524[mxl-3p::mxl-3(∆138-160)::6 × his::gfp] + unc-119(+)}といった欠失変異体はいずれも、脂質蓄積およびリソソームへの局在という点において、MXL-3(Full)::GFPと同様に加齢やシトルリン処理に応答した(補足図4b–d)。このことは、これらアミノ酸配列が、本タンパク質の機能およびシトルリンに対する応答に必須ではないことを示唆している。 |
| 対照的に、結合に関与しうる5つの残基(D228、Q229、A232、K234、I235)が欠失しているものの、リソソーム局在化モチーフは保持しているMXL-3(∆228-235)::GFP {unc-119(ed9);kunEx525[mxl-3p::mxl-3(∆228-235)::6 × his::gfp] + unc-119(+)}は、老齢処理した線虫やシトルリン処理下において、主に核内に留まっていた(図5d、e)。このことは、同タンパク質が、シトルリンに応答してリソソームへ移行する能力を失ったことを示唆している。次に、MXL-3(∆228–235)::GFPをmxl-3(ok1947)変異体線虫に導入した。MXL-3(Full)::GFPとは異なり、MXL-3(∆228-235)::GFPタンパク質は、mxl-3(ok1947)変異体における脂質蓄積(図5f、g)および寿命(図5h)の表現型をレスキューできなかった。さらに、他のコンストラクトとは異なり、MXL-3(∆228-235)::GFPはmxl-3(ok1947) 老齢個体におけるpyr-1の発現を回復させることもできなかった(補足図4e)。以上の結果を総合すると、MXL-3の228~235番目のアミノ酸領域は、寿命延長を目的としたシトルリン誘導性の脂質沈着を制御する機能において不可欠であることが示される。 |
| 次に、MXL-3がシトルリンに直接結合するかどうかを調べるため、マイクロスケール熱泳動(MST)アッセイを行った。野生型MXL-3およびHisタグを融合させた短縮型MXL-3(∆228–235 AA)の2種類のコンストラクト(図5i)を作製し、哺乳類由来の293F細胞株で発現させた。マイクロスケール熱泳動(解析の結果、精製したMXL-3タンパク質はシトルリンへの結合活性を示したのに対し、短縮型MXL-3(Δ228–235 AA)タンパク質はその結合活性を完全に消失していた(図5j)。しかしながら、シトルリンの添加は、mxl-3(ok1947)変異体と同様に、mxl-3(ok1947);mxl-3(∆228–235)::gfp線虫においても脂質の蓄積を促進した(補足図4f, g)。このことは、MXL-3がシトルリンの上流で作用して加齢に伴う脂質沈着を制御していることをさらに裏付けるものである。一方で、MXL-3とシトルリンの結合は付随的な現象に過ぎず、シトルリンを介した脂質蓄積には必須ではない可能性がある。 |
| 2.6.シトルリンは寿命延長のためにDGAT-2/MBOA-2を介した脂質合成を活性化する |
| シトルリンの増加が脂質の蓄積をもたらしたことから、次に我々は、それがどのように脂質代謝を再構築するのかを検討した。RNA-seqデータにより、老齢個体では脂質合成が亢進していることが明らかになった(図3a)。ジアシルグリセロールアシルトランスフェラーゼ(DGAT)は、ジアシルグリセロール(DAG)と脂肪酸アシルCoAを共有結合させてトリアシルグリセロールを形成する反応を触媒する、トリアシルグリセロール合成における重要な酵素である(67)。C. elegansにおいて、dgat-2やmboa-1~mboa-7を含むいくつかの遺伝子は、哺乳類のジアシルグリセロールアシルトランスフェラーゼのホモログである(55,56.68,69)。これらの遺伝子の機能を、加齢およびシトルリンへの応答という観点から調べるために、各遺伝子の変異体を用いた。野生型N2個体と同様に、各遺伝子の単独変異体においても、老齢段階で脂質蓄積の増加が認められた(図6a–cおよび補足図5a, b)。対照的に、dgat-2(kun140);mboa-2(gk870525)二重変異体では、加齢に伴う脂質蓄積は認められなかった(図6a–c)。 |
| 図6. シトルリンはDGAT2/MBOA2を活性化し、健康寿命のために脂質蓄積を促進する |
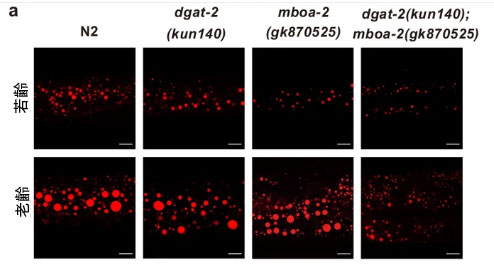 |
| a )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
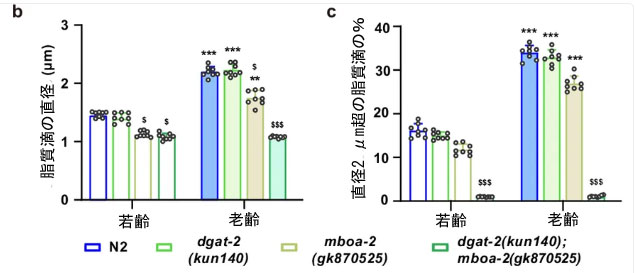 |
| b, c )(a) に基づく脂質滴の直径 (b) および直径2 μm超の脂質滴の割合 (c) の定量結果。データは平均値 ± 標準偏差 (SD) で示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001 (若齢対老齢、Studentのt検定)。$P < 0.05, $$$P < 0.001 (示された変異体対野生型、Studentのt検定)。 |
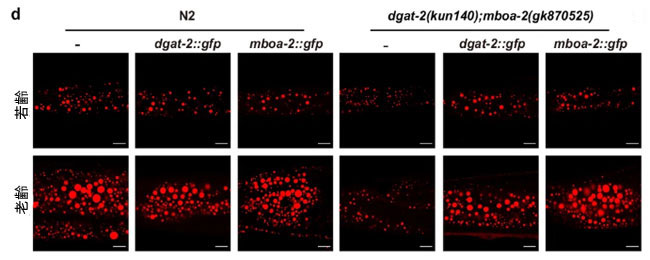 |
| d )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
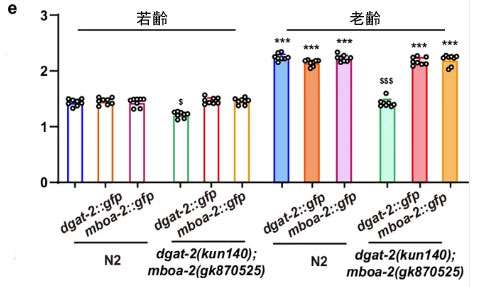 |
| e) (d) に基づく脂質滴直径の定量結果。データは平均値 ± SDで示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001 (若齢対老齢、Studentのt検定)。$P < 0.05, $$$P < 0.001 (dgat-2;mboa-2対野生型、Studentのt検定)。 |
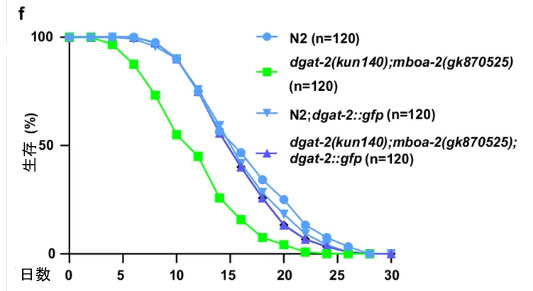 |
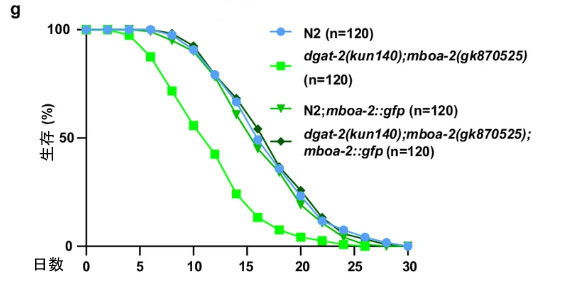 |
f, g )NGMプレート上での生存曲線(L4期から観察)。線虫数 n = 120。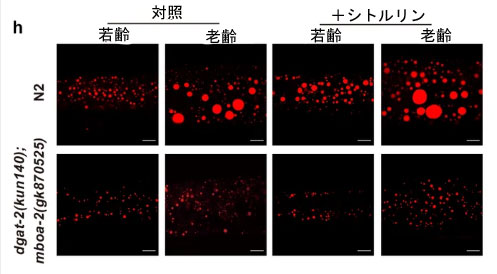 |
| h )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
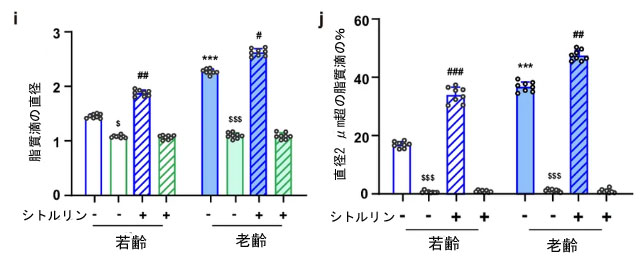 |
| i, j )(h) に基づく脂質滴直径 (i) および直径2 μm超の脂質滴の割合 (j) の定量結果。データは平均値 ± SDで示し、各群につき代表的な個体8匹(n = 8)を用いた。***P < 0.001 (若齢対老齢、Studentのt検定)。#P < 0.05, ##P < 0.01 (シトルリン対対照群、Studentのt検定)。 $P < 0.05, $$$P < 0.001 (dgat-2;mboa-2 対 野生型、Studentのt検定)。 |
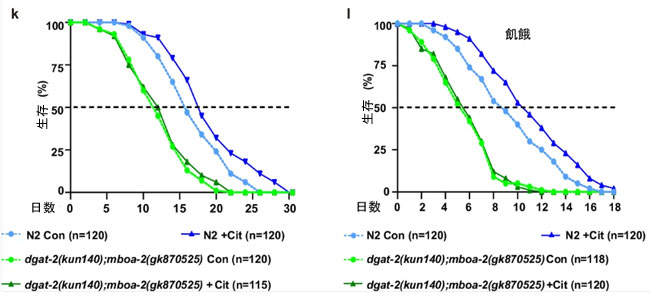 |
k )10 mMシトルリン(Cit)の有無におけるNGMプレート上での生存曲線(L4期から観察)。n = 観察した線虫の総数。 l )10 mMシトルリンの有無における、飢餓条件(M9)下の老齢線虫の生存曲線。 n = 観察した線虫の総数。 |
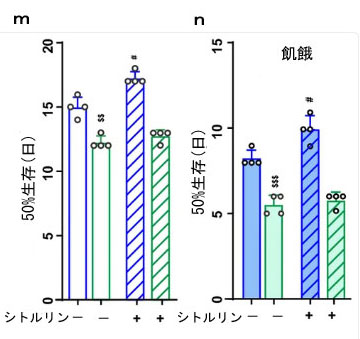 |
| m, n )(k)および(l)に基づく50%生存時間。データは平均値 ± 標準偏差(SD)で示し、n = 4(生物学的反復)。#P < 0.05 (Cit 対 対照、Studentのt検定)。$$P < 0.01, $$$P < 0.001 (dgat-2;mboa-2 対 野生型、Studentのt検定)。 |
| 次に、トランスジェニック線虫 MBOA-2::GFP {unc-119(ed9);kunEx520[mboa-2p::mboa-2::6 × his::gfp] + unc-119(+)} を作製した。この線虫は、GFP::DGAT-2線虫 {hjSi56 [vha-6p::3xFLAG::TEV::GFP::dgat-2::let-858 3'UTR]} と同様に、老齢期およびシトルリン処理下でGFP蛍光強度とタンパク質量が増加した(68)(補足図5c–f)。これらの結果は、老齢期の線虫における dgat-2 および mboa-2 のmRNAレベルの上昇と整合している(図3aおよび補足図2a)。dgat-2 または mboa-2のRNAiによるノックダウンは、それぞれ GFP::DGAT-2 または MBOA-2::GFP の蛍光発現を有意に抑制した(補足図5g, h)。dgat-2 RNAiは、他の mboa 変異体線虫における加齢に伴う脂質蓄積には影響を及ぼさなかった(補足図5a, b)。mboa-2(gk870525)変異体(図6a–c)と同様に、mboa-2 RNAiは、老齢期の3種類の dgat-2変異体線虫すべてにおいて脂質蓄積を抑制した(補足図5i, j)。さらに、我々は2つのコンストラクト(dgat-2p::dgat-2::his::gfp およびmboa-2p::mboa-2::his::gfp;補足図5k)を作製し、それらを野生型N2および dgat-2(kun140);mboa-2(gk870525) 変異体線虫にそれぞれ注入した。これらのコンストラクトは、野生型N2線虫の脂質蓄積には影響を与えなかったものの、dgat-2(kun140);mboa-2(gk870525)変異体線虫における若齢期および老齢期の脂質蓄積をいずれも正常に回復することができた(図6d, e)。さらに重要なことに、これらは dgat-2(kun140);mboa-2(gk870525)変異体線虫において短縮していた寿命を、野生型N2株と同等のレベルまで完全に回復させた(図6f, g)。以上の結果を総合すると、DGAT-2/MBOA-2が、加齢に伴う脂質蓄積および寿命延長における脂質合成を介して機能していることが示唆される。 |
| 次に、野生型N2線虫に加え、dgat-2(kun140);mboa-2(gk870525)二重変異体線虫に対しても、シトルリンを投与する処理を行いました。注目すべきことに、シトルリンを補給しても、dgat-2(kun140);mboa-2(gk870525)線虫における脂質蓄積の増加(図6h–j)や寿命の回復(図6k–n)は全く認められませんでした。これらの変異体線虫はすべて、加齢に伴う脂質蓄積への抵抗性と寿命の短縮という同様の表現型を示していましたが、この結果はmxl-3(ok1947)線虫の場合(図3g–l)とは全く異なるものでした。以上の結果を総合すると、加齢過程におけるシトルリン誘導性の脂質蓄積および寿命延長には、DGAT-2/MBOA-2を介した脂質合成が不可欠であることがさらに裏付けられます。 |
| 2.7.MXL-3-シトルリン軸はDGAT-2/MBOA-2の発現およびリソソームへの局在を制御する |
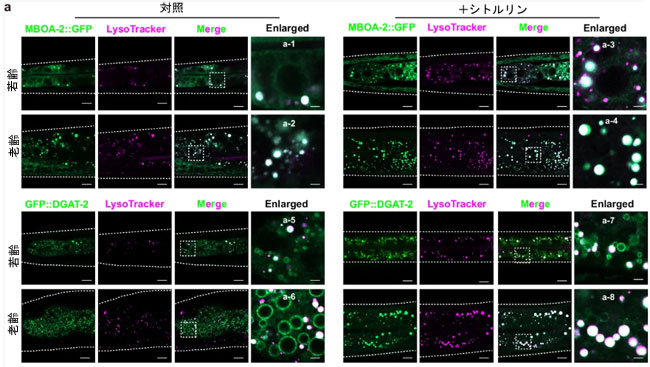
| 線虫(C. elegans)において、DGAT-2は脂質合成に関与する小胞体(ER)または脂質滴関連タンパク質として知られているが(68,70)、MBOA-2の細胞内局在については十分に解明されていない。MBOA-2::GFPと、小胞体マーカーmCherry::HDEL {hjSi158 [vha-6p::sel-1(1-79)::mCherry:: hdel::let-858 3'UTR]}、脂質滴マーカーPLIN-1::mCherryおよびDHS-3::mCherry {ldrEx20 [dhs-3p::dhs-3::mCherry + unc-76(+)]}、ならびにリソソーム染色試薬Lysotracker Redとの共局在を調べたところ、MBOA-2がこれらの細胞内小器官に局在することが明らかになった(補足図6)。興味深いことに、MBOA-2::GFPの蛍光は、老齢期においてリソソームへの移行が増加し(図7a, bおよび補足図6)、シトルリン処理によってその移行がさらに著しく促進された(図7a, b)。GFP::DGAT-2においても、程度の差はあるものの同様の現象が観察された(図7a, b)。これらの結果は、MXL-3の場合と同様に、加齢やシトルリン処理がMBOA-2およびDGAT-2のリソソームへの移行を促進することを示唆している。 |
| 図7. MXL-3は、DGAT-2/MBOA-2のリソソームへの局在および機能を制御する |
 |
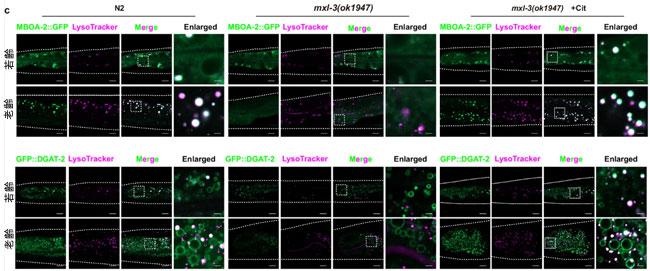 |
| a, c )シトルリン(Cit)処理または未処理の線虫における、Lysotrackerで染色されたリソソームに対するMBOA-2::GFPまたはGFP::DGAT-2の局在。スケールバー:2 μm(拡大図)、10 μm(その他)。 |
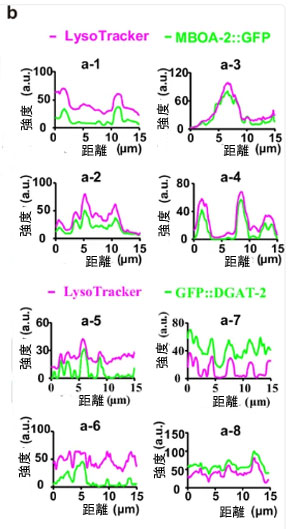 |
| b )高倍率領域((a)のA-1-4およびA-5-8)における標識の強度プロファイル。LysotrackerとMBOA-2::GFPまたはGFP::DGAT-2の局在を示す。 |
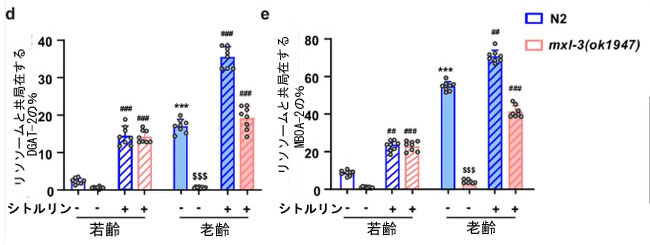 |
| d, e )(c)におけるGFP::DGAT-2 (d)またはMBOA-2::GFP (e)とリソソームとの共局在の定量解析。データは平均値±標準偏差(SD)で示し、各群につき代表的な個体8匹(n=8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。##P < 0.01、###P < 0.001(シトルリン対対照、Studentのt検定)。$$$P < 0.001(mxl-3対野生型、Studentのt検定)。 |
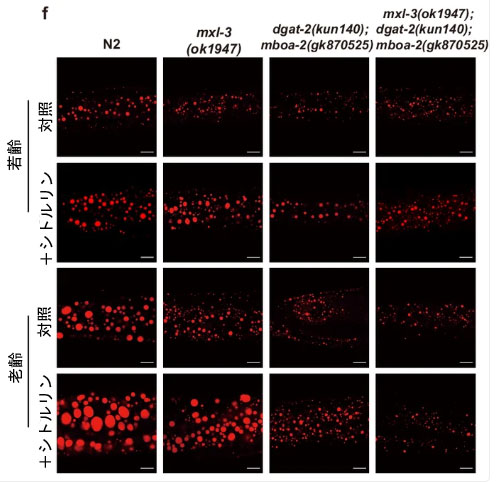 |
| f )固定した線虫のLipidTOX染色像。スケールバー:10 μm。 |
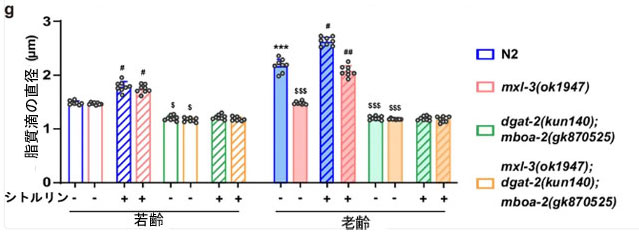 |
| g )(f)における脂質滴直径の定量解析。データは平均値±標準偏差(SD)で示し、各群につき代表的な個体8匹(n=8)を用いた。***P < 0.001(若齢対老齢、Studentのt検定)。#P < 0.05、##P < 0.01(シトルリン対対照、Studentのt検定)。$P < 0.05、$$$P < 0.001(示された変異体対野生型、Studentのt検定)。 |
| 次に、MXL-3とDGAT-2/MBOA-2との関係を調べるため、MBOA-2::GFPおよびGFP::DGAT-2をそれぞれmxl-3(ok1947)変異体に導入しました。老齢期において、野生型N2と比較して、mxl-3(ok1947)変異体ではMBOA-2::GFPおよびGFP::DGAT-2の蛍光強度(補足図7a–d)、特にリソソームへの移行(図7c–e)が著しく低下していました。これらの変化はシトルリン処理によって回復したことから(図7c–e)、MXL-3がMBOA-2およびDGAT-2の発現とリソソームへの移行を制御する上流因子として機能していることが示唆されました。MXL-3の下流エフェクターであるpyr-1のRNAi処理下でも同様の効果が観察されました(補足図8)。さらに、三重変異体mxl-3(ok1947);dgat-2(kun140);mboa-2(gk870525)を作製しました。この変異体では、シトルリン処理下でも老齢期における脂質蓄積の回復が見られませんでした。この結果は二重変異体dgat-2(kun140);mboa-2(gk870525)と同様でしたが、単独変異体mxl-3(ok1947)とは異なるものでした(図7f, g)。このことは、MXL-3とシトルリンによる加齢に伴う脂質蓄積の促進には、DGAT-2/MBOA-2を介した脂質合成が必要であることを示唆しています。以上のデータは、加齢に伴う脂質リモデリングを制御する「MXL-3-シトルリン-DGAT-2/MBOA-2」軸の存在をさらに裏付けるものです(図8)。 |
| 図8. C. elegansにおいて、MXL-3-シトルリン-DGAT-2/MBOA-2軸が健康寿命のために脂質代謝を制御する仕組みに関する提案モデル |
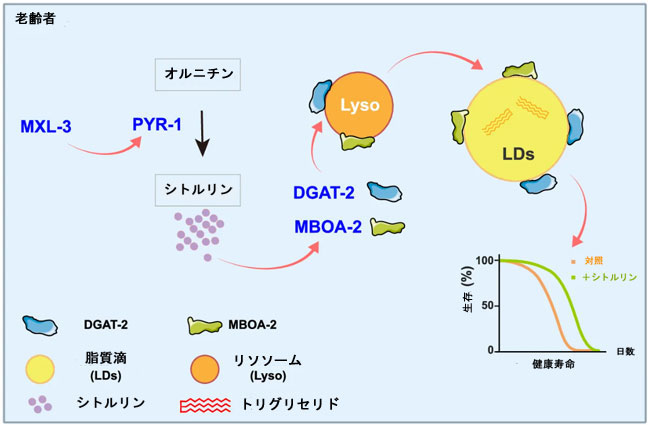 |
| 加齢に伴い転写因子MXL-3が活性化し、シトルリン生合成に関与するPYR-1の発現を増大させます。これにより、脂質合成酵素であるDGAT-2およびMBOA-2のリソソームへの移行が誘発され、トリアシルグリセロールの合成と蓄積が促進されることで、健康寿命が維持されます。 |
| 3.考察 |
| 過剰な脂質蓄積も脂質欠乏も、死亡リスクを高める要因となります。ヒトや動物を対象とした研究から、適切な生理的レベルの脂質蓄積を維持することは、健康上の利点をもたらし、特に高齢者においては回復を助ける可能性があることが示されています(13–17,19–23)。本研究では、線虫(C. elegans)を用いて、加齢に伴う脂質蓄積の増加が健康寿命の維持に不可欠であることを確認しました。さらに、尿素回路の代謝産物であるシトルリンが、脂質合成酵素DGAT-2およびMBOA-2を介した加齢に伴う脂質リモデリングを誘発し、線虫の健康寿命を維持することを明らかにしました(ただし、その詳細なメカニズムについてはさらなる解明が必要です)。加齢は転写因子MXL-3の発現を活性化し、それによってオルニチン・トランスカルバミラーゼPYR-1の発現とシトルリン生合成を亢進させ、脂質蓄積と健康寿命の維持を促進します。PYR-1やその制御因子MXL-3といったシトルリン生合成に関与する遺伝子の変異により脂質蓄積が減少すると、通常条件下および飢餓条件下において線虫の寿命が短縮します。また、シトルリンを食事から補給して脂質蓄積を回復させると、寿命の短縮が解消されます。この効果は、脂質合成酵素DGAT-2とMBOA-2の両方に機能不全がある線虫では完全に消失することから、長寿効果の発揮には脂質蓄積が不可欠であることが裏付けられました。以上のことから、健康寿命維持のための加齢に伴う脂質蓄積を制御する際、DGAT-2/MBOA-2を介した脂質合成を駆動する特異的な代謝産物としてシトルリンを特定しました(図8)。我々の知る限り、モデル生物である線虫を用いて、加齢に伴う脂質蓄積が「健康的な脂肪」であり、健康寿命にとって実際に必要かつ有益であることを示した研究は、本研究が初めてである可能性があります。 |
| 代謝産物は、エネルギー代謝、酸化ストレス、炎症などのプロセスを調節することで、老化において極めて重要な役割を果たしています。標的メタボロミクス解析の結果、若齢線虫と比較して、高齢線虫で最も顕著に増加した代謝産物として、S-アデノシルメチオニン(SAM)とシトルリンが上位2つに挙げられました。近年の研究により、脂質代謝や寿命におけるS-アデノシルメチオニンの複雑な役割が報告されています。例えば、線虫(C. elegans)においてはS-アデノシルメチオニン合成の低下が長寿に寄与する可能性がありますが(33,34)、一方でショウジョウバエでは寿命を短縮させることが示されています(71)。さらに、S-アデノシルメチオニン合成の低下は、線虫、マウスの肝臓、およびヒト細胞における脂質蓄積の増加も引き起こします(35,72)。対照的に、マウスにおいてグリシンN-メチルトランスフェラーゼ遺伝子をノックアウトすると、S-アデノシルメチオニンレベルの上昇に加え、脂肪肝、線維化、肝細胞がん(HCC)が生じることが報告されています(72,73)。我々の研究でも同様に、S-アデノシルメチオニンの経口投与が若齢線虫と老齢線虫の双方において脂質蓄積を促進することが示されました。したがって、S-アデノシルメチオニンの欠乏と過剰のいずれもが脂質蓄積を招く可能性があり、脂質代謝や寿命延長におけるS-アデノシルメチオニンの役割は、状況(コンテクスト)に依存していると考えられます。 |
| 非タンパク質構成アミノ酸であるシトルリンは、寿命延長に関与する脂質蓄積と関連する代謝産物として機能します。加齢に伴いシトルリンの蓄積が誘導されますが、これは線虫(C. elegans)の寿命維持に不可欠なものです。げっ歯類を用いた研究では、マウス(74,75)やラットにおいて加齢に伴うシトルリンレベルの低下が報告されており、特に若齢個体(4ヶ月齢)と高齢個体(24ヶ月齢)を比較すると、前庭神経核(VNC)や小脳(CE)といった特定の脳領域で顕著な減少が見られます(76,77)。対照的に、ヒトのデータでは、血中のシトルリンレベルと加齢との間に正の相関があることが一貫して示されています(40,45,47,78,79)。この傾向は、長寿コホートにおけるシトルリン値の上昇を示すエビデンス(38, 39, 41, 44, 46)を含め、複数の大規模研究(42, 48–50)によってさらに裏付けられています。げっ歯類とヒトの間でこのような乖離が見られる理由は不明ですが、種の違い、あるいは調査対象となった臓器や組織の違いに起因している可能性があります。しかしながら、我々が線虫で得た知見では、加齢に伴うシトルリンの増加が確認されており、これはげっ歯類のモデルよりもヒトの疫学データに近い結果となっています。こうした保存されたパターンは、加齢におけるシトルリンの作用機序を解明する上で、線虫が有用な実験モデルであることを強調しています。 |
| リソソームは、栄養、エネルギー、脂質に関するシグナルを統合し、寿命を中枢的に制御している(80)。具体的には、リソソームはアミノ酸感知に伴うmTORC1の活性化の場として機能するほか、グルコースやエネルギーの監視に関わるAMPKのプラットフォームとも関連している(81–83)。興味深いことに、加齢に伴いMXL-3はリソソームへと顕著に移行するが、この過程はシトルリンによって促進される。MXL-3のリソソーム局在には、そのN末端にある5つのアミノ酸(DMYLL)配列が必要である。このリソソーム局在シグナルを欠失させると、リソソームへの局在が阻害されるだけでなく、さらに重要な点として、OA(オレイン酸負荷)条件下にある線虫における脂質蓄積を解消できなくなる。同様に、アミノ酸残基228~235の領域は、リソソームへの移行、pyr-1の発現、脂質蓄積、寿命の制御といったMXL-3の機能に不可欠である。シトルリンとの結合も同様に重要であるが、これは付随的な現象である可能性もある。さらに、PYR-1を介したシトルリン合成を通じて機能している可能性のあるMXL-3は、DGAT-2およびMBOA-2の加齢に伴うリソソーム局在を制御している。このことは、これら酵素が小胞体や脂質滴に関連するタンパク質であるという従来の認識に再考を迫るものである。これらの知見は、代謝および寿命の制御におけるリソソームの「中枢ハブ」としての機能に関する我々の理解を深めるものである。 |
| 経口シトルリン摂取は、多くの有益な効果をもたらすことが実証されています。主にアルギニンの優れた前駆体として機能し、血漿アルギニン濃度を効果的に上昇させるとともに一酸化窒素(NO)の産生を促進します。これにより、高齢者において重要な課題である血管内皮機能や血行動態がサポートされます(84–87)。さらに、シトルリンは身体組成を改善し、加齢に伴う代謝機能の低下を緩和します(88)。また、栄養不良の老齢ラットにおいて窒素バランスを回復させ、タンパク質合成を促進することで筋タンパク質代謝を調節するほか(89–91)、加齢モデルにおける認知機能の低下を改善することも示されています(92)。加えて、シトルリンは強力なヒドロキシラジカル・スカベンジャーとして作用し抗酸化特性を示すため、加齢や身体活動に伴う酸化ストレスを軽減します(93,94)。何よりも重要な点として、経口L-シトルリン摂取は幅広い用量において一般的に忍容性が高く、ヒトおよび動物モデルのいずれにおいても重篤な有害事象は報告されていません(95,96)。したがって、シトルリンは加齢に伴う問題の緩和に向けた、極めて有望な栄養学的介入手段と言えます。 |
| 4.方法 |
| 4.1.C. elegans株の維持およびRNAi |
| 線虫は、大腸菌OP50またはHT115を播種したNGMプレート上で飼育した。すべての実験は20℃で行った。使用した株は、Caenorhabditis Genetic Centerから入手するか、あるいはPingsheng Liu研究室(中国・北京、生物物理学研究所)、Xiaochen Wang研究室(中国・深セン、南方科技大学)、Ho Yi Mak研究室(中国・香港、香港科技大学)より提供を受けた。本研究で使用したC. elegans株をSupplementary Data 4に記載した。RNAiは摂食法を用いて行った。空ベクターとしてL4440プラスミドを保持する大腸菌HT115、または標的遺伝子に対する二本鎖RNA発現プラスミドを保持する大腸菌HT115は、Ahringer C. elegans RNAiライブラリーから購入した。RNAi用細菌は、100 μg/mLのアンピシリンを含むLB培地で37℃にて一晩培養した後、100 μg/mLのアンピシリンと1 mMのIPTG(イソプロピル-β-D-1-チオガラクトピラノシド)を添加したNGMプレートに播種した。発生段階を同調させたL1期の線虫を、指定の細菌を播種したプレートに移し、若齢成虫または老齢成虫の段階に達するまで飼育した後、以後の解析のために回収した。すべてのRNAi実験において、線虫には大腸菌HT115を給餌した。 |
| 4.2.トランスジェニック線虫の作製 |
| トランスジェニック線虫作製用のコンストラクトを、該当する図に模式的に示しました。一般に、構築したプラスミドは、MOS (Minos 1) プロトコル97に従ってEG4322株(ttTi5605; unc-119[ed9])または個別に指定された線虫株のバックグラウンドに注入されました。本研究で使用したプライマーの配列情報は、Supplementary Data 5に記載されています。 |
| 4.3.固定線虫のLipidTOX染色 |
| 若齢または老齢の線虫を約500匹回収し、氷上で1 mLの水に懸濁した後、調製したばかりの10% PFA(パラホルムアルデヒド)溶液50 µLを加えて混合した。線虫を直ちに液体窒素で短時間凍結し、不完全な凍結・融解サイクルを2回行った後、M9バッファーで3回洗浄してPFA溶液を除去した。線虫にLipidTOX(1:2000、H34475、Life Technologies)を添加し、室温で1時間インキュベートした。続いて、線虫をM9バッファーで3回洗浄し、顕微鏡観察および撮影を行うために2%アガロースパッド上に載せた。画像は、Zeiss LSM-800 Metaレーザー走査型顕微鏡を用い、63倍油浸対物レンズを使用してマルチトラックモード(シングルまたはデュアル励起)で取得し、LSM Imageソフトウェア(Carl Zeiss)を用いて脂質滴の直径を測定した。生物学的反復は3回または4回行った。各生物学的反復において、表現型判定のために100匹以上の線虫を観察し、各線虫株における脂質滴の平均直径を測定するために代表的な8匹の線虫を測定対象とした。 |
| 4.4.LysoTracker染色 |
| リソソームの生合成を評価するために、LysoTracker Red DND-99(L7528、Invitrogen)を用いた。C. elegansを、所定の細菌を播種したプレート上で若齢または老齢期まで飼育した。その後、線虫をLysoTracker Red(M9緩衝液で1:500に希釈)またはM9緩衝液(対照)を含む播種プレートに移し、観察前に暗所で4時間培養した。最後に、線虫をM9緩衝液で3回洗浄し、顕微鏡観察および撮影を行うために2%アガロースパッド上に載せた。撮影には、Plan-Apochromat 63×/1.4 Oil DIC対物レンズを装着した高分解能レーザー共焦点顕微鏡(LSM800、Carl Zeiss)を使用した。画像処理は、ZENソフトウェア(Black edition、Carl Zeiss)を用いて行った。 |
| 4.5.TAGの分析 |
| 約50,000匹の成虫を回収し、全脂質を抽出した後、シリカゲルプレート(1.05721.0001、Supelco)を用いたTLC(展開溶媒:ヘキサン:ジエチルエーテル:酢酸=80:20:2)により分離を行った。続いて、TAGおよびPL(リン脂質)の各バンドをプレートから掻き取り、2.5% H₂SO₄を含むメタノールを用いて2時間メチル化処理を行った。最後に、メチル化された脂肪酸をガスクロマトグラフ(GC)(Agilent 8890A)を用いて分析した。分析にはDBWAXカラム(Agilent;30 m × 0.25 mm × 0.25 μm)を使用し、キャリアガスには窒素(流量1.4 mL/min)を用い、検出器には水素炎イオン化検出器(FID)を使用した。カラム温度プログラムは、120°Cで1分間保持した後、20°C/minの昇温速度で190°Cまで昇温する設定とした。190°Cで10分間保持した後、200°Cまで昇温(2°C/min)して3分間保持し、さらに220°Cまで昇温(2°C/min)して3分間保持した。各脂肪酸の同定には、脂肪酸標準品としてGLC NESTLE 37 MIX(CDAA-M-252795-DZ、ANPEL Prep、中国)を使用した。TAG含量は、全脂質(TAG + PL)に対するTAG由来脂肪酸の割合として算出した。各サンプルについて3回の反復測定を行い、各群につき3~4個体の生物学的反復を用いた。 |
| 4.6.mRNAの単離、qPCR、およびRNA-Seq |
| 約2000匹の若齢および老齢の線虫をRNAiso Plus(9109、タカラ)中で回収し、線虫からmRNAを単離した。PrimeScript RT reagent kit(RR047A、タカラバイオ)を用いて、mRNAをcDNAに逆転写した。qPCRについては、SYBR Green Master Mix(Applied Biosystems)を用い、ABI 7900HTシステム上で、4つの生物学的反復(各3技術的反復)によりmRNA量を定量した。相対的な発現量はΔΔCt法により算出し、その際、tbb-2をリファレンス遺伝子として使用した。対象遺伝子のプライマー配列はSupplementary Data 5に記載されている。RNAシーケンシングについては、1.5 μgのトータルRNAを用いてライブラリを調製し(Novogene)、Illumina HiSeq 4000プラットフォームでシーケンシングを行った。シーケンシングライブラリは、メーカーの推奨手順に従いNEBNext Ultra™ RNA Library Prep Kit for Illumina(NEB)を用いて作製し、各サンプルに配列を割り当てるためのインデックスコードを付加した。 |
| 4.7.蛍光の可視化 |
| 蛍光観察を行うため、若齢および老齢の線虫を洗浄し、固定用の10 mMレバミゾールを含むアガロースパッド上に載置した。その後、広視野顕微鏡(BX53、オリンパス)またはAiryscan搭載の高分解能レーザー共焦点顕微鏡(Zeiss、LSM-800)を用いて線虫を撮影した。 |
| 4.8.ウェスタンブロッティング解析 |
| 若齢および老齢の線虫をM9バッファー中で回収し、氷上で数回洗浄した後、液体窒素で急速凍結し、使用時まで−80℃で保存した。各線虫サンプルに、プロテアーゼ阻害剤カクテル(P8340, Sigma)およびフェニルメチルスルホニルフルオリド(PMSF)(10837091001, Roche)を添加したRIPAバッファー(P0013, Beyotime)100 μLを加えて溶解し、4℃でホモジナイズした。タンパク質濃度はBCAアッセイ(23235, Thermo Fisher)により測定した。サンプルは2×SDSバッファー(100 mM Tris-HCl [pH 6.8]、20% グリセロール、4% SDS、0.2% ブロモフェノールブルー、3% DTT)中で95℃、5分間処理して変性させ、等量のタンパク質サンプルを10–12% SDS-PAGEで分離した後、氷上で0.25 A、100分間かけてPVDF膜に転写した。膜を5%脱脂粉乳(A600669, Sangon Biotech)でブロッキングした後、抗GFP抗体(1:1000, ab290, Abcam)、抗β-アクチン抗体(1:1000, A5441, Sigma)、および抗Hisタグ抗体(1:10000, 66005-1-Ig, Proteintech)と共に4℃で一晩インキュベートした。膜を洗浄し、ヤギ抗ウサギIgG抗体(1:5000, 31460, Thermo Fisher)またはヤギ抗マウスIgG抗体(1:5000, 31430, Thermo Fisher)と共にインキュベートした。シグナルはSageCaptureシステム(Sage)を用いて検出され、LANE 1Dソフトウェア(Sage)で解析された。 |
| 4.9.シトルリンの食事性補給 |
| シトルリン(C9530、Solarbio)をddH₂Oに溶解してフィルター滅菌した後、所定の濃度でNGMに添加した。標準的なアッセイでは、10 mMのシトルリンを含むプレートにOP50またはHT115細菌を播種し、2~3日間乾燥させた後、発生段階を同調させたL1期の線虫を、シトルリンを添加または無添加のNGMプレートに移した。その後、LipidTOX染色または蛍光発現解析を行うために、所定の発生段階で線虫を回収した。 |
| 4.10.メタボローム解析 |
| 約10万匹の若齢および高齢の線虫をddH2Oで回収し、氷上で沈降させた。その後、線虫を3回洗浄し、細菌の残渣を完全に除去した。沈降後、上清を除去し、サンプルを液体窒素で急速凍結してから-80℃で保存した。サンプルを氷上で融解し、冷却したメタノール:アセトニトリル:H2O(2:2:1)を加え、超音波処理により線虫をホモジナイズした。この混合液を-20°Cで10分間静置した。続いて、ホモジネートを4°C、14,000 × gで15分間遠心分離した。上清を新しいチューブに移し、乾燥させた。乾燥させたサンプルをアセトニトリル:H2O(1:1)に溶解し、ボルテックス(攪拌)した後、4°C、14,000 × gで15分間遠心分離した。0.2 μmフィルターでろ過した上清を測定に用いた。2 μLのサンプルを、HILICカラムおよびC18カラムを装着したAgilent 1290 Infinity LC超高速液体クロマトグラフィー(UHPLC)システムを用いて分析した。HILICカラムについては、カラム温度を35°C、流速を0.3 mL/minに設定した。移動相は、A(2 mM ギ酸アンモニウム、10% アセトニトリル水溶液)およびB(0.4% ギ酸含有アセトニトリル)で構成した。移動相Bのグラジエント溶出プログラムは以下の通りである:0~1.0分、85%;1.0~3.0分、85%から80%へ直線的に減少;3.0~4.0分、80%。 4.0~6.0分間は80%から70%へ直線的に減少、6.0~10.0分間は70%から50%へ直線的に減少、10~15.5分間は50%で保持、15.5~15.6分間は50%から85%へ直線的に増加、15.6~23分間は85%で保持とした。C18カラムについては、カラム温度を40℃、流速を0.4 mL/minに設定した。移動相はA(5 mM 酢酸アンモニウム)およびB(99.5% アセトニトリル)で構成した。移動相Bのグラジエント溶出プログラムは以下の通りである:0~5分間は5%から60%へ直線的に増加、5~11分間は60%から100%へ直線的に増加、11~13分間は100%で保持、13~13.1分間は100%から5%へ直線的に減少、13.1~16分間は5%で保持。実験期間中、試料温度は4℃に維持した。質量分析は、AB6500+ QTRAP質量分析計(AB SCIEX社製)を用いて行った。エレクトロスプレーイオン化(ESI)源の条件は以下の通りである:ソース温度 580℃、イオンソースガス1(GS1) 45、イオンソースガス2(GS2) 60、カーテンガス(CUR) 35、イオンスプレー電圧(IS)はポジティブモードで+4500 V、ネガティブモードで-4500 Vとした。検出にはマルチプルリアクションモニタリング(MRM)モードを用いた。 MRM生データはMultiQuantまたはAnalystソフトウェアを用いてピーク積分処理を行い、各被検物質と内部標準物質とのピーク面積比を算出した。濃度は検量線に基づいて算出した。データの解析にはGraphPad Prism 8(GraphPad Software社、米国カリフォルニア州ラホヤ)を使用した。各群について、5つの生物学的反復サンプルを採取した。 |
| 4.11.シトルリンの測定 |
| 約10万匹の若齢および老齢の線虫を回収し、メタノール:アセトニトリル:水(2:2:1)を用いて抽出を行った。遠心分離後、上清を乾燥させ、アセトニトリル:水(1:9)に再溶解した。これをボルテックスで混合した後、4°C、14,000 × gで15分間遠心分離した。得られた上清を0.2 μmフィルターでろ過し、測定に供した。各群について4つの生物学的反復サンプルを調製した。5 μLのサンプルを、超高速液体クロマトグラフィー・タンデム質量分析(UPLC-MS/MS)プラットフォームを用いて分析した。分離にはUPLC BEH HILICカラム(2.1 × 50 mm、1.7 μm、Waters社製、米国)を用い、グラジエント溶出法により、カラム温度を40°Cに設定して行った。移動相Aは10 mM酢酸アンモニウム水溶液、移動相Bはアセトニトリルとした。流速は0.4 mL/minとした。移動相Bのグラジエントプログラムは以下の通りである:0~0.5分、90%;0.5~2分、90%から60%へ直線的に減少;2~4.0分、60%;4~4.1分、60%から90%へ直線的に増加;4.1~6.0分、90%で保持。実験期間中、サンプル温度は25°Cに維持された。Agilent 1290-6460C UPLC-MS/MSシステム(Agilent社製、米国)を、ポジティブエレクトロスプレーイオン化(ESI⁺)モードで稼働させた。装置のパラメータは、ガス温度300°C、ガス流量5 L/min(窒素99.5%)、シースガス温度250°C、キャピラリー電圧3500 V、ノズル電圧500 Vに設定した。シトルリンの測定は、マルチプルリアクションモニタリング(MRM)モードで行った。シトルリンのMRMイオントランジションは、Cit 176 → 113(定量イオン、CE = 16 V)および176 → 70.1(定性イオン、CE = 24 V)とした(Supplementary Data 6)。UPLC-MS/MSデータの解析には、Agilent MassHunter Qualitative Analysisソフトウェア バージョンB.07.01(Agilent Technologies社、米国カリフォルニア州パロアルト)を使用した。各代謝物について、7点の検量点を用いて検量線の直線性(リニアリティ)を評価した。濃度は、総タンパク質量(BCA法により測定)に対して正規化した。データの解析にはGraphPad Prism 8を使用した。 |
| 4.12.生存率の測定実験 |
| 通常の寿命解析では、発生段階を同調させたL4期の線虫約120匹をNGMプレートに移植し、その日を0日目(D0)としました。以降、順に1日目(D1)、2日目(D2)…と定義しました。線虫は、繁殖が停止するまで2日ごとに新しいプレートへ移植しました。最後の1匹が死滅するまで、隔日で生存状況を観察・記録しました。各線虫株について、3回の生物学的反復実験を行いました。データの解析にはGraphPad Prismを使用しました。 |
| 飢餓条件下における線虫の生存を調べるため、約120匹の老齢線虫を10 mMシトルリンを含む、あるいは含まないNGMプレート上で培養した後、シトルリンを含む、あるいは含まないM9緩衝液に移し、20℃で培養した。最後の1匹が死滅するまで、生存個体数と死滅個体数を毎日計数した。データの解析にはGraphPad Prismを使用した。 |
| 4.13.タンパク質・低分子ドッキング実験 |
| 標的タンパク質に対するコアリガンド化合物の結合親和性を評価するため、分子ドッキング解析を実施した。シトルリン(CID: 9750)の分子構造は、PubChem(https://pubchem.ncbi.nlm.nih.gov/)からMol2形式で取得した。Chem 3Dソフトウェアを用いてコンフォメーションの最適化を行い、続いてAutoDockTools 1.5.7を用いて電荷の割り当てを行った。水素原子の付加および二面角の調整を行い、シトルリンの構造をpdbqt形式に変換した。タンパク質MXL-3(UniProt ID: Q18711)の予測構造は、UniProtデータベース(https://www.uniprot.org)から取得した。当該タンパク質に対して水素原子の付加および水分子の除去を行い、その後pdbqt形式に変換した。AutoDockTools 1.5.7を用いてタンパク質とリガンド間の分子ドッキングを行い、その結果をPyMOLソフトウェアで可視化した。 |
| 4.14.マイクロスケール熱泳動(MST)アッセイ |
| 全長MXL-3タンパク質およびMXL-3(Δ228–235 AA)欠失タンパク質に対するシトルリンの結合能を評価するため、既報103に従い、哺乳類細胞発現系(HEK293F細胞)を用いてタンパク質の発現および精製を行った。まず、C. elegans由来の全長MXL-3タンパク質および短縮型MXL-3(Δ228–235 AA)タンパク質の配列をpEZT-hisベクターにクローニングし、BacMamシステムを用いて発現させた。Sf9細胞でバキュロウイルスを増幅・調製した後、HEK293F細胞に感染させ、タンパク質の発現および精製を行った。 |
| 続いて、各精製タンパク質(200 nM)を、RED-Tris-NTAタンパク質標識キット(MO-L018、NanoTemper Technologies)を用いて蛍光色素で標識した。その後、標識タンパク質を様々な濃度のシトルリンと混合し、インキュベートした。最後に、その混合液をMST測定装置(NanoTemper Technologies)にセットして測定を行い、親和性解析ソフトウェア(NanoTemper Technologies)を用いて結合データを記録・解析し、解離定数を決定した。 |
| 4.15.データ解析 |
| すべてのデータは平均値±標準偏差(SD)で示した。統計的有意差は、各データセットに適したスチューデントのt検定(両側)を用いて判定した。各実験は3または4回の生物学的反復で行った。各線虫株について、代表的な8匹の線虫を対象に脂質滴の平均直径を測定した。すべてのグラフはGraphPad Prism 8(GraphPad Software社、米国カリフォルニア州ラホヤ)を用いて作成し、図の構成はAdobe Illustrator 2023を用いて行った。 |
参考文献(本文中の文献No.は原論文の文献No.と一致していますので、下記の論文名をクリックして、原論文に記載されている文献を参考にしてください) |
|
この文献は、Nat Commun. 2026 Jul 14;17:8656.に掲載されたCitrulline drives age-related lipid deposition for healthspan.を日本語に訳したものです。タイトルをクリックして原文を読むことが出来ます。 |
